






Natalia C. Irrazabal
1. Introducción
Las emociones son una de las manifestaciones más visibles e influyentes de la vida mental humana. Inciden en cómo percibimos el mundo, cómo tomamos decisiones, cómo nos relacionamos con los demás y cómo evaluamos nuestra propia existencia. Sin embargo, su definición precisa, su naturaleza y sus mecanismos subyacentes han constituido uno de los debates más persistentes y productivos de la psicología científica desde sus orígenes.
Durante gran parte del siglo XX, el estudio académico de la emoción fue relegado en los paradigmas conductista y cognitivista que dominaban la psicología experimental. Sin embargo, desde la década de 1980 se produjo un giro decisivo en el que el avance de las neurociencias, las técnicas de neuroimagen funcional, los estudios transculturales y la psicología evolucionista confluyeron para convertir la emoción en uno de los campos más dinámicos de las ciencias de la conducta.
En la actualidad, la ciencia afectiva (affective science en la literatura anglosajona) integra perspectivas de la psicología, la neurociencia afectiva, la biología, la antropología y la ciencia computacional. Esta convergencia ha generado avances significativos, pero también ha profundizado en viejas controversias y abierto nuevas. El debate entre quienes postulan emociones básicas innatas y universales (Ekman, 1992; Panksepp, 1998) y quienes sostienen que las emociones son construcciones del cerebro dependientes del contexto y la cultura (Barrett, 2017; Mesquita, 2022) constituye hoy uno de los ejes centrales del campo.
A estas tensiones se suma la crítica al sesgo WEIRD (sigla del inglés Western, Educated, Industrialized, Rich, Democratic), que señala que la mayor parte de los modelos psicológicos se construyeron sobre muestras de conveniencia universitarias occidentales. En el campo de la emoción, este sesgo es particularmente problemático dado que los procesos afectivos son, en buena medida, prácticas sociales y culturales antes que propiedades puramente biológicas individuales (Henrich et al., 2010; Mesquita, 2022).
Este capítulo presenta una revisión exhaustiva y actualizada de la emoción como proceso psicológico básico. Se organiza siguiendo un recorrido que va de las definiciones y componentes, pasa por las principales perspectivas teóricas (incluyendo los desarrollos más recientes en procesamiento predictivo e interoceptivo) y aborda las bases neurales y la relación entre emoción y otros procesos cognitivos a lo largo del ciclo evolutivo. Revisaremos las controversias, los aportes, las dimensiones culturales y biológicas, así como las posibles aplicaciones prácticas.
2. ¿Qué es una emoción? Debates conceptuales contemporáneos
2.1. Componentes de la emoción
Antes de avanzar en la conceptualización de la emoción es importante señalar una precisión terminológica en la distinción entre emoción, estado de ánimo y sentimiento. La emoción es una respuesta puntual, relativamente breve, orientada hacia un objeto específico. El estado de ánimo es más prolongado y frecuentemente difuso en términos de objeto. El sentimiento, por su parte, refiere específicamente al correlato subjetivo consciente de los procesos afectivos (Barrett, 2017; LeDoux, 2015).
Específicamente refiriéndonos a la emoción, en la ciencia afectiva contemporánea, el abordaje componencial es uno de los modelos más aceptados (Niedenthal & Ric, 2017; Sander & Scherer, 2014). Desde esta perspectiva, una emoción es un evento multidimensional que involucra al menos cinco componentes que operan de manera coordinada. El componente cognitivo-evaluativo refiere a los procesos de valoración (appraisal), mediante los cuales las personas evalúan la relevancia de un estímulo para sus metas y bienestar. El componente fisiológico-autonómico incluye los cambios en el sistema nervioso autónomo (como la frecuencia cardíaca, la conductancia de la piel, la actividad endocrina) que preparan al organismo para la acción. El componente expresivo-motor comprende las manifestaciones observables de la emoción, particularmente las expresiones faciales y la postura corporal. El componente motivacional-conductual refiere a las tendencias de acción asociadas a cada estado emocional. Finalmente, el componente subjetivo-fenomenológico corresponde a la experiencia consciente de sentir una emoción.
La teoría de proceso componente (Component Process Theory, CPT) de Scherer (2001, 2009) es el modelo más completo de esta aproximación. Scherer propone que los cinco componentes no se activan secuencialmente, sino que lo hacen de manera sincronizada en respuesta a una serie de evaluaciones que el organismo realiza sobre el estímulo: novedad, valencia intrínseca, relevancia para las metas, potencial de afrontamiento y compatibilidad con normas sociales (Scherer & Moors, 2019).
2.2. El problema de la definición: el debate esencialismo/construccionismo
El debate más profundo del campo afectivo contemporáneo es epistemológico: ¿son las emociones entidades naturales con características definitorias y una base biológica discreta o son construcciones que el cerebro genera a partir de ingredientes más básicos?
La teoría de las emociones básicas (Basic Emotion Theory, BET), asociada principalmente a Paul Ekman (1992) y Jaak Panksepp (1998), sostiene que existe un número pequeño de emociones (miedo, alegría, tristeza, ira, asco, sorpresa y desprecio, según distintas versiones) que son universales, innatas y se corresponden con circuitos neurales específicos. Cada emoción básica posee un perfil diferenciado de señales fisiológicas, expresiones faciales universales y tendencias de acción propias. Esta teoría entiende cada emoción como una categoría discreta.
La teoría de la emoción construida (Theory of Constructed Emotion, TCE) de Lisa Feldman Barrett (2017) rechaza el esencialismo y propone que las emociones son construcciones del cerebro que emergen de la combinación de tres ingredientes: señales interoceptivas (información sobre el estado interno del cuerpo), conceptos emocionales aprendidos culturalmente y el contexto situacional presente. No existen, según esta teoría, circuitos neuronales dedicados a emociones específicas. El cerebro utiliza redes distribuidas que se activan de manera variable e inconsistente (fenómeno denominado degeneración) para construir instancias emocionales en el momento preciso en que se necesitan.
Este debate no es meramente académico, sino que tiene consecuencias para la clínica, para el diseño de sistemas de reconocimiento emocional en inteligencia artificial y para la antropología y la educación. A lo largo del capítulo se retomarán sus implicaciones en cada dominio.
2.3. Modelos dimensionales: el espacio afectivo
Un tercer enfoque organizador de la ciencia afectiva es el modelo dimensional. En lugar de postular categorías discretas de emoción, el enfoque dimensional propone que la totalidad de los estados afectivos puede representarse en un espacio continuo definido por un pequeño número de dimensiones ortogonales.
El modelo circunflejo de Russell (1980) constituye la propuesta dimensional más influyente y empíricamente fundamentada. Russell organizó los términos afectivos en un espacio bidimensional cuyos ejes son: (a) la dimensión de valencia, que varía de desagradable a agradable, y (b) la dimensión de activación (arousal), que varía de bajo nivel de activación a alto nivel de activación. En este espacio, términos como excitado (alta activación, alta valencia positiva), sereno (baja activación, alta valencia positiva), triste (baja activación, baja valencia) y ansioso (alta activación, baja valencia) ocupan posiciones características. Las emociones discretas (como el miedo, la alegría, la ira, la tristeza) son vistas como instancias prototípicas de regiones del espacio circunflejo, no como entidades naturales separadas.
Este modelo ha tenido un impacto metodológico extraordinario en la investigación empírica. Instrumentos como el maniquí de autoevaluación (Self-Assessment Manikin, SAM; Bradley & Lang, 1994) y el sistema internacional de estímulos estandarizados de imágenes afectivas (International Affective Picture System, IAPS; Lang et al., 1999) operacionalizan precisamente las dimensiones de valencia, activación y dominancia como forma de caracterizar las respuestas afectivas a estímulos. La compatibilidad del modelo circunflejo con los marcos de procesamiento predictivo (que explicaremos en el próximo apartado) lo hace especialmente relevante para las teorías contemporáneas de la emoción (Barrett, 2017; Seth, 2021). Una limitación central del modelo dimensional es que puede subestimar la especificidad funcional de algunas emociones. Por ejemplo, aunque la ira y el miedo son ambas emociones de alta activación y baja valencia, tienen tendencias de acción, perfiles fisiológicos y consecuencias conductuales diferenciadas que el espacio bidimensional no captura por sí solo.
Estas distintas posiciones teóricas (y sus derivaciones prácticas) coexisten actualmente. Esto hace que el campo de la psicología de la emoción se encuentre aún atravesado por debates activos en cuanto a las bases teóricas y los métodos válidos para el estudio de la emoción.
3. Perspectivas teóricas
3.1. Perspectiva biológico-evolucionista
La perspectiva biológico-evolucionista parte del trabajo fundacional de Charles Darwin (1872), quien en La expresión de las emociones en el hombre y los animales argumentó que las expresiones emocionales son adaptaciones filogenéticas con funciones comunicativas y de preparación para la acción. Paul Ekman, casi un siglo después, amplió y operacionalizó la tesis darwiniana a través de estudios transculturales clásicos que identificaron seis (y luego siete) expresiones faciales universales. El sistema FACS (Facial Action Coding System) desarrollado junto con Friesen (1978) descompone las expresiones faciales emocionales en unidades de acción musculares (Action Units, AU) y ha sido ampliamente utilizado en investigación básica y aplicada. Sin embargo, la universalidad de las expresiones faciales ha sido cuestionada de manera creciente por estudios de metaanálisis que muestran que las expresiones son altamente variables incluso dentro de una misma cultura (Camras & Fatani, 2008; Lindquist et al., 2020). En esta misma línea de trabajo, Jaak Panksepp (1998, 2012) propuso desde la neurociencia afectiva un conjunto de siete sistemas emocionales primarios (búsqueda, ira, miedo, lujuria, cuidado, pánico/dolor y juego) localizados en estructuras subcorticales evolutivamente antiguas y compartidas por todos los mamíferos. La evidencia de estimulación eléctrica y farmacológica en animales apoya la identificación de estos sistemas, aunque su extrapolación directa a la experiencia subjetiva humana sigue siendo debatida.
3.2. La reconceptualización de LeDoux: circuitos de supervivencia y sentimientos
El modelo de doble vía propuesto por LeDoux (1986, 1994, 1996) constituyó durante décadas el marco de referencia dominante para explicar el procesamiento neural de estímulos amenazantes. A partir de experimentos de condicionamiento clásico al miedo en ratas con lesiones selectivas, LeDoux identificó dos rutas paralelas desde el tálamo sensorial hasta la amígdala. La vía corta (tálamo → amígdala) transmite una representación rápida y emocionalmente relevante del estímulo en aproximadamente 12 milisegundos. La vía larga (tálamo → corteza sensorial → amígdala) conduce una representación elaborada y perceptualmente precisa del mismo estímulo con una latencia de entre 25 y 50 milisegundos.
En sus trabajos de 2019 y 2022, LeDoux formalizó la distinción bajo el concepto de circuitos de supervivencia. Estos circuitos tienen como función primaria detectar condiciones relevantes para la supervivencia y coordinar respuestas conductuales y fisiológicas apropiadas. LeDoux sugiere sustituir la expresión “condicionamiento al miedo” por “condicionamiento a la amenaza”, más precisa y menos cargada de supuestos sobre la experiencia subjetiva. En relación con la experiencia subjetiva (o sentimiento), LeDoux incorpora el papel de la memoria en su constitución. Su tesis es que el contenido cualitativo de una experiencia consciente (sentimiento) no está determinado por los circuitos que generan los estados de activación, sino por la similitud de ese estado con representaciones mnémicas previas (Lau et al., 2022).
3.3. Perspectiva cognitiva: la evaluación (appraisal)
Las teorías cognitivas de la emoción comparten el supuesto de que las emociones son generadas o moduladas por procesos evaluativos mediante los cuales las personas valoramos la relevancia de los eventos para las metas, el bienestar y la identidad. El concepto fue introducido por Magda Arnold (1960), quien lo definió como la percepción intuitiva de la relevancia de un objeto para la persona. Según Arnold, los estímulos van a generar evaluaciones de aproximación (cuando el estímulo se evalúa como positivo para las metas personales) o de evitación (cuando el estímulo se evalúa como negativo). Richard Lazarus (1991) elaboró el modelo de appraisal más influyente, en el cual distinguió evaluación primaria (relevancia del evento para el bienestar) y evaluación secundaria (capacidad de afrontamiento disponible). La emoción resultante depende de la configuración específica de estas evaluaciones. El modelo fue enriquecido por Scherer (2001) en su teoría de proceso componente, que añade evaluaciones de potencial motivacional y compatibilidad con normas sociales.
Lazarus (1991) desarrolló, además, el concepto de temas relacionales nucleares: cada emoción específica se corresponde con un patrón evaluativo particular que resume la relación persona-ambiente. La ira emerge cuando la persona evalúa una ofensa degradante contra sí misma o los suyos; la ansiedad, ante una amenaza incierta y existencial; la culpa, ante la transgresión de un imperativo moral internalizado; la tristeza, ante una pérdida irrevocable; la alegría, ante un progreso razonable hacia una meta valorada, y el orgullo, ante el realce del ego propio mediante un logro atribuido a sí mismo. Smith y Lazarus (1993) formalizaron estas correspondencias mostrando que los patrones de appraisal predicen diferencialmente las emociones específicas con mayor precisión que las dimensiones de valencia y activación por sí solas. Un aporte central de la perspectiva de Lazarus es su insistencia en que la emoción no es nunca puramente interna, es siempre relacional, motivacional y cognitiva. La emoción emerge de la transacción continua entre la persona y su ambiente, filtrada por evaluaciones que reflejan la historia personal del individuo, sus metas activas y sus recursos de afrontamiento. Esta insistencia en la naturaleza transaccional de la emoción distingue al modelo de appraisal tanto de las teorías biológicas (que enfatizan mecanismos innatos) como de las teorías dimensionales (que describen pero no explican la generación de emociones específicas).
Las teorías de appraisal tienen la ventaja de explicar por qué el mismo evento puede generar emociones distintas en personas diferentes, y son compatibles con intervenciones psicoterapéuticas orientadas a modificar los patrones evaluativos (reevaluación cognitiva). Su limitación principal es que tienden a enfatizar el componente deliberado y consciente de la evaluación, aunque versiones más recientes incorporan appraisals automáticos e implícitos.
3.4. La teoría de la emoción construida y el procesamiento predictivo
La teoría de la emoción construida (TCE) de Lisa Feldman Barrett (2017) constituye el desarrollo teórico más debatido e influyente de la última década en el campo afectivo. Para comprender sus fundamentos es necesario conocer los conceptos de homeostasis y alostasis, procesos clave sobre el funcionamiento del cerebro y el cuerpo.
La homeostasis clásica describe el mantenimiento de variables fisiológicas dentro de rangos estables mediante correcciones reactivas (por ejemplo, sudar cuando la temperatura corporal sube). La alostasis, concepto introducido por Sterling y Eyer (1988) y desarrollado posteriormente por McEwen (1998), describe un proceso más sofisticado y proactivo, según el cual el cerebro no espera que las variables fisiológicas se desvíen para corregirlas, sino que anticipa las demandas futuras del organismo y ajusta preventivamente su fisiología. Gestionar alostáticamente el organismo significa, entonces, regular el gasto energético y las funciones corporales de manera predictiva, preparando el cuerpo para lo que probablemente necesitará hacer. Desde esta perspectiva, el cerebro actúa como un órgano de administración del presupuesto corporal que invierte recursos fisiológicos por anticipado, evalúa los resultados y ajusta sus predicciones futuras.
El fundamento neurocientífico de la TCE es el procesamiento predictivo. Según este marco, el cerebro mantiene en todo momento un modelo interno del mundo que genera predicciones sobre los estados futuros del entorno externo y del propio cuerpo. Las emociones emergen cuando el cerebro utiliza conceptos emocionales aprendidos culturalmente para categorizar y dar sentido a los estados interoceptivos que representan la gestión alostática del organismo. Cuando el corazón se acelera y los músculos se tensan en anticipación a un gasto energético, el cerebro busca en su repertorio de conceptos emocionales la categoría que mejor explique esas señales en ese contexto, y esa categorización, contextualizada y culturalmente mediada, es lo que Barrett denomina emoción.
Anil Seth (2021) amplió este marco al proponer que las emociones y los estados de ánimo son percepciones orientadas al control, que regulan las variables esenciales del cuerpo. En el marco de Seth, las emociones no son respuestas a estímulos externos sino predicciones interoceptivas que el cerebro genera para mantener la homeostasis y la alostasis. La experiencia emocional consciente sería, entonces, la forma en que el cerebro representa sus propias predicciones sobre el estado interno del cuerpo, más que un reflejo directo de ese estado.
La TCE no está exenta de críticas. Sus detractores argumentan que subestima la evidencia de consistencia transcultural en las expresiones emocionales (Ekman y Cordaro, 2011; Izard, 2011) y que la noción de degeneración (la idea de que distintas configuraciones neurales pueden producir el mismo estado emocional) no es incompatible con la existencia de emociones básicas con bases neurales consistentes. El debate continúa activo y es uno de los más productivos de la psicología contemporánea.
4. Teorías clásicas de la emoción: fundamentos históricos vigentes
Aunque el campo de estudio de la emoción avanzó considerablemente en el siglo XXI, las teorías clásicas del siglo XIX y XX conservan relevancia tanto histórica como conceptual, en tanto representan las primeras formulaciones sistemáticas sobre la relación entre cuerpo, cognición y emoción.
4.1. James-Lange: la teoría periférica
William James (1884) y Carl Lange (1885), de manera independiente, propusieron una inversión radical de la intuición cotidiana sobre el origen de las emociones. La teoría del sentido común sostiene que la percepción de un estímulo relevante provoca primero un sentimiento emocional (el miedo, la alegría, la tristeza) y que ese estado mental es el que desencadena las respuestas corporales subsecuentes (el corazón se acelera porque tenemos miedo, lloramos porque estamos tristes). James y Lange invirtieron esta causalidad de manera deliberada y contraintuitiva y plantearon que no lloramos porque estamos tristes, sino que estamos tristes porque lloramos.
Según esta teoría, la secuencia causal sigue el patrón que se enuncia a continuación. En primer lugar, un estímulo emocionalmente relevante en el entorno provoca, de manera refleja e inmediata, una serie de cambios en el cuerpo (cambios viscerales, vasomotores y musculoesqueléticos). Luego, la percepción consciente de esos cambios corporales (que se genera por el feedback que sube de los cambios del sistema nervioso periférico a la corteza cerebral) constituye el sentimiento emocional. La emoción no antecede al cuerpo, sino que es el cuerpo percibido. James ilustraba esta idea de manera vívida con el clásico ejemplo del oso. Si imaginamos un oso en el bosque y suprimimos mentalmente todas las respuestas corporales que acompañan al encuentro (la aceleración cardíaca, la tensión muscular, la contracción del estómago, el impulso de huir), no quedará ningún estado residual que podamos llamar genuinamente “miedo”. Quedará, a lo sumo, una representación cognitiva fría de “hay un oso”. Entonces, la secuencia propuesta en el ejemplo del oso sería: veo un oso, corro para protegerme del peligro que supone el oso, mientras estoy corriendo percibo mis cambios corporales, me doy cuenta de que estoy experimentando miedo.
Las contribuciones de James y Lange diferían en el énfasis. James otorgó relevancia central tanto a las vísceras como a los músculos y la piel, subrayando que distintas emociones corresponden a patrones corporales diferenciados y específicos. No existe un arousal corporal único y genérico, sino configuraciones somáticas particulares para el miedo, la ira, la tristeza o la alegría. Lange, en cambio, privilegió los cambios vasomotores (especialmente las variaciones en el flujo sanguíneo y la frecuencia cardíaca) como el sustrato principal de la experiencia afectiva, anticipando lo que hoy denominamos indicadores de actividad del sistema nervioso autónomo.
La teoría de James-Lange ha demostrado una notable fertilidad conceptual. Anticipó en más de un siglo los modelos contemporáneos de marcador somático (Damasio, 1994), que proponen que la toma de decisiones está guiada por señales corporales asociadas a experiencias emocionales pasadas, y los modelos de procesamiento predictivo interoceptivo (Barrett, 2017; Seth, 2021), que conciben las emociones como inferencias activas del cerebro sobre el estado interno del cuerpo. En todos estos marcos, el cuerpo no es el instrumento pasivo de estados mentales preexistentes, sino el sustrato generativo de la experiencia emocional. La teoría periférica sentó también las bases para una línea de investigación en retroalimentación corporal (estudios sobre retroalimentación facial, postural y cardiovascular) que continúa debatiéndose y refinándose en la psicología contemporánea (Niedenthal, 2007; Strack et al., 1988).
4.2. Cannon-Bard: la teoría central
Walter Cannon (1927, 1929) formuló la crítica más sistemática e influyente a la teoría de James-Lange, articulando cinco objeciones que socavaron su base empírica. En primer lugar, señaló que los cambios viscerales son demasiado lentos. Las vísceras responden con una latencia de varios segundos (incluso minutos), mientras que la experiencia emocional puede surgir de manera casi instantánea ante un estímulo. En segundo lugar, los cambios en órganos internos son cualitativamente inespecíficos. La misma activación autonómica (aceleración cardíaca, sudoración, contracción gastrointestinal) acompaña a emociones tan distintas como el miedo, la ira o la alegría, pero también a estados fisiológicos no emocionales, como la fiebre o el ejercicio físico intenso. En tercer lugar, la inducción artificial de cambios viscerales mediante inyecciones de adrenalina no produce emociones genuinas, sino únicamente la “sensación como si” de emoción (un estado de activación sin contenido afectivo reconocido).
Para someter su argumento a prueba empírica, Cannon realizó una serie de experimentos de denervación simpática en gatos. Mediante intervención quirúrgica, seccionó los nervios que transmiten información visceral al cerebro, con lo cual eliminó la retroalimentación periférica que James consideraba el sustrato indispensable de la emoción. A pesar de esta supresión, los animales continuaban mostrando respuestas emocionales reconocibles (respuestas de defensa, vocalizaciones de miedo, reacciones de ira) ante estímulos relevantes del entorno. La conclusión era directa. El sistema nervioso periférico no es condición necesaria para que emerja la emoción. El sustrato emocional debe residir, de manera prioritaria, en el sistema nervioso central.
Cannon propuso que el tálamo es la estructura neurológica clave. Ante un estímulo emocionalmente relevante, el tálamo emite señales simultáneas en dos direcciones: hacia la corteza cerebral (generando la experiencia subjetiva consciente del sentimiento) y hacia el hipotálamo y el sistema nervioso autónomo (coordinando la respuesta fisiológica periférica). Emoción y activación corporal son, por tanto, procesos paralelos e independientes, no causalmente encadenados como postulaba la teoría periférica. Esta arquitectura dual rompió con la secuencia lineal de James-Lange y reubicó el origen de la emoción en el encéfalo.
Philip Bard (1934) refinó y extendió esta propuesta. Identificó al hipotálamo (en lugar del tálamo) como el centro coordinador de las respuestas emocionales integradas, incluyendo cambios autonómicos, endócrinos y conductuales. La teoría de Cannon-Bard anticipa con notable precisión los modelos neurales contemporáneos. Por ejemplo, es la base de la distinción entre activación subcortical de respuestas defensivas y construcción cortical de la experiencia consciente formulada por LeDoux (2015), y la arquitectura de circuitos emocionales distribuidos que integra la amígdala, el hipotálamo y la corteza prefrontal como nodos funcionalmente interdependientes.
4.3. Schachter-Singer (1962): la teoría bifactorial
Stanley Schachter y Jerome Singer (1962) propusieron una síntesis entre los elementos somatosensoriales y cognitivos. Según los autores, la experiencia emocional requiere dos factores concurrentes: activación fisiológica inespecífica (arousal) y atribución cognitiva (appraisal) de esa activación a una causa específica. La emoción que se experimenta no depende de la naturaleza del arousal en sí (que es inespecífico y cualitativamente indiferenciado) sino de la etiqueta cognitiva que la persona le aplica en función del contexto disponible. La misma activación fisiológica puede, de este modo, dar lugar a emociones cualitativamente distintas según el entorno social que le otorgue significado.
Para someter esta hipótesis a prueba empírica, Schachter y Singer diseñaron un experimento con un esquema factorial que combinó el tipo de información provista sobre los efectos del fármaco con el contexto social de la espera. Los participantes recibieron una inyección que se presentó como un suplemento vitamínico llamado Suproxin, supuestamente para evaluar sus efectos sobre la visión. En realidad, la sustancia administrada era epinefrina (adrenalina), una hormona que produce activación autonómica intensa (aumento de la frecuencia cardíaca, temblor de manos, rubor facial y sensación de calor). Se manipularon tres condiciones de información: en la condición informada, los participantes recibían una descripción precisa de los efectos fisiológicos que experimentarían; en la condición ignorante, no recibían ninguna explicación; y en la condición desinformada, se les atribuían síntomas falsos (entumecimiento de los pies, picazón leve, dolor de cabeza) que no coincidían con los efectos reales de la epinefrina. Un cuarto grupo recibía una inyección de solución salina (placebo) sin información sobre efectos.
Tras la inyección, cada participante esperaba en una sala junto a un cómplice del experimentador que actuaba, según la condición asignada, de manera notoriamente eufórica o de manera progresivamente enojada, expresando irritación ante las preguntas del cuestionario que ambos debían completar. Los resultados confirmaron las predicciones centrales de la teoría. Los participantes en la condición ignorante (quienes experimentaban una activación fisiológica intensa sin explicación) mostraron mayor contagio emocional con el cómplice que quienes estaban informados. Se comportaron de manera más eufórica en la condición eufórica y reportaron más ira en la condición de enojo. La condición desinformada produjo los efectos más marcados de la condición eufórica, ya que los participantes tenían una explicación falsa que no coincidía con lo que sentían, lo cual los dejaba más receptivos a las claves del entorno. Los participantes informados, en cambio, disponían de una explicación farmacológica suficiente para su arousal y no necesitaban recurrir al contexto social para darle sentido, por lo que permanecieron más emocionalmente neutros.
La teoría bifactorial, aunque cuestionada metodológicamente, anticipó el constructo de regulación de la atribución emocional y la idea de que la categorización cognitiva es esencial en la construcción de la experiencia emocional subjetiva.
4.4. Plutchik: teoría psicoevolutiva y la rueda de las emociones
Robert Plutchik (1980, 1991) desarrolló una teoría psicoevolutiva de las emociones que constituye uno de los modelos clasificatorios de mayor difusión en la psicología educativa y clínica. A diferencia de los modelos bidimensionales (como el circunflejo de Russell) o de las listas discretas de emociones básicas de Ekman, Plutchik integra la dimensión evolutiva con una representación geométrica que da cuenta simultáneamente de la categoría, la intensidad y las relaciones entre emociones.
El modelo propone ocho emociones primarias organizadas en cuatro pares de opuestos: alegría/tristeza, confianza/asco, miedo/ira y anticipación/sorpresa. Cada emoción primaria está filogenéticamente ligada a un patrón conductual de supervivencia. El miedo activa la protección (huida o escondite), la ira activa la destrucción de obstáculos, la alegría activa el acercamiento, la tristeza activa la reintegración tras la pérdida, el asco activa el rechazo de sustancias nocivas, la confianza activa la incorporación, la anticipación activa la exploración y la sorpresa activa la orientación ante lo inesperado.
La representación gráfica (la célebre rueda de las emociones) organiza estos ocho sectores en un cono tridimensional. El eje vertical del cono representa la intensidad. Las emociones se intensifican al moverse hacia el centro de la rueda (de la serenidad a la alegría, y luego al éxtasis; del fastidio a la ira, y luego a la rabia). Las emociones secundarias (díadas) emergen de la combinación de dos primarias adyacentes. Alegría + confianza generan amor; miedo + sorpresa generan alarma; ira + asco generan desprecio. El modelo de Plutchik ha sido criticado por su carácter esencialmente intuitivo y por la falta de validación empírica rigurosa de las combinaciones propuestas. No obstante, constituye una herramienta pedagógica valiosa por su capacidad para representar la riqueza del espacio emocional humano.
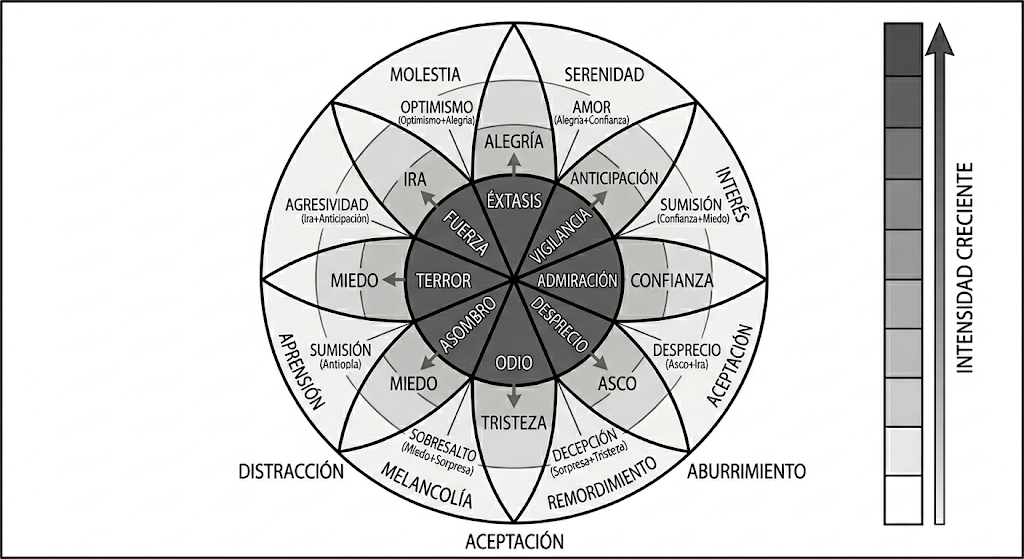
Figura 1. Rueda de las emociones de Plutchik.
4.5. El circuito de Papez: antecedente histórico de la neurociencia afectiva
El neurólogo James Papez (1937) propuso, con décadas de anticipación a las técnicas de neuroimagen, un circuito anatómico para las emociones que articulaba el hipocampo, el fórnix, los cuerpos mamilares, el núcleo anterior del tálamo, el giro y la corteza cingulados. El circuito fue posteriormente ampliado por MacLean (1952) en su modelo del sistema límbico. Aunque el circuito de Papez como tal ha sido superado por modelos más complejos y distribuidos, su relevancia histórica es fundamental, ya que fue el primer intento de integrar la neuroanatomía funcional con la experiencia emocional y anticipó conceptos que la neurociencia afectiva contemporánea retomó con herramientas metodológicas mucho más precisas.
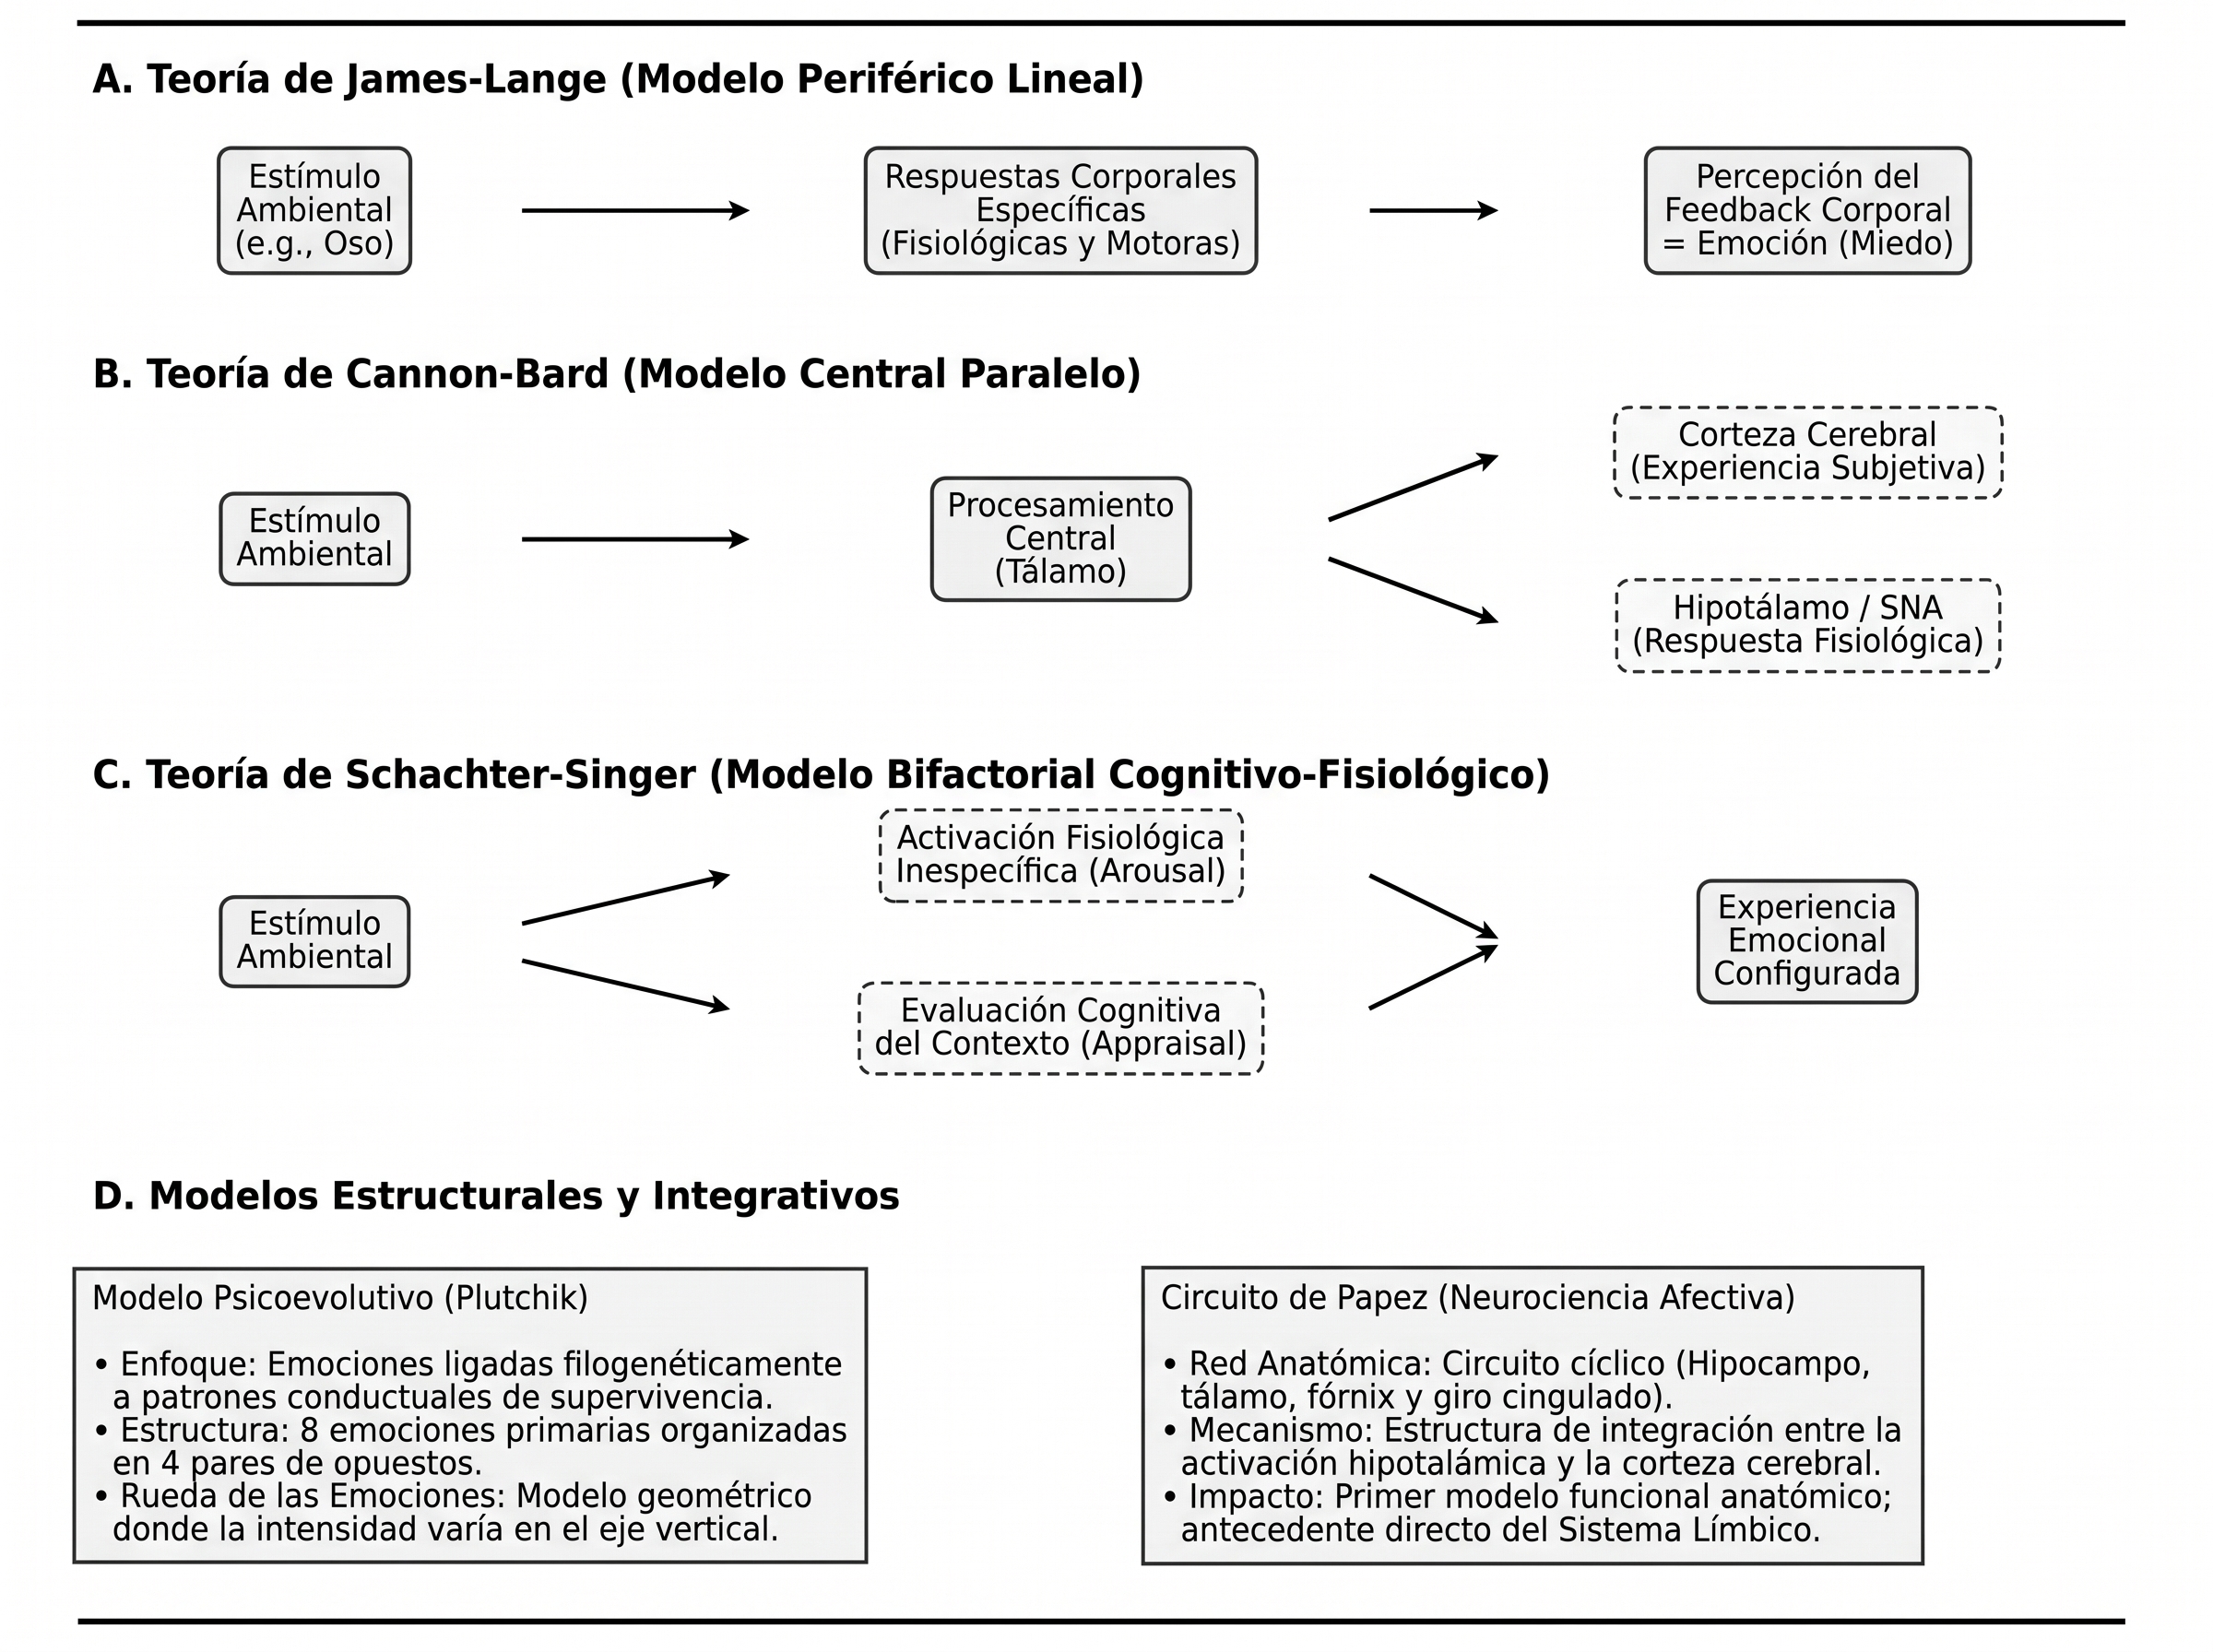
Figura 2. Esquema comparativo de las teorías clásicas de la emoción.
5. Expresión emocional: universalidad, variabilidad y el debate contemporáneo
5.1. El sistema FACS y las expresiones faciales
El sistema de codificación de la acción facial (Facial Action Coding System, FACS) desarrollado por Ekman y Friesen (1978), descompone las expresiones en 44 unidades de acción (AU) que corresponden a contracciones musculares específicas. Cada emoción básica se asocia con una configuración distintiva de AU: la alegría involucra los AU 6+12 (contracción del orbicular del ojo y del cigomático mayor), el miedo los AU 1+2+4+5+7+20+26, y así sucesivamente.
El FACS ha tenido un impacto extraordinario en la investigación del reconocimiento de emociones, la psicología forense y el desarrollo de sistemas de reconocimiento facial automatizado. Las microexpresiones (expresiones espontáneas que duran entre 1/25 y 1/15 de segundo y que escapan parcialmente al control voluntario) han sido propuestas como marcadores de emociones suprimidas con aplicaciones en detección de engaño, aunque la validez diagnóstica de estos marcadores es aún objeto de debate (Porter & ten Brinke, 2008; Matsumoto et al., 2013).
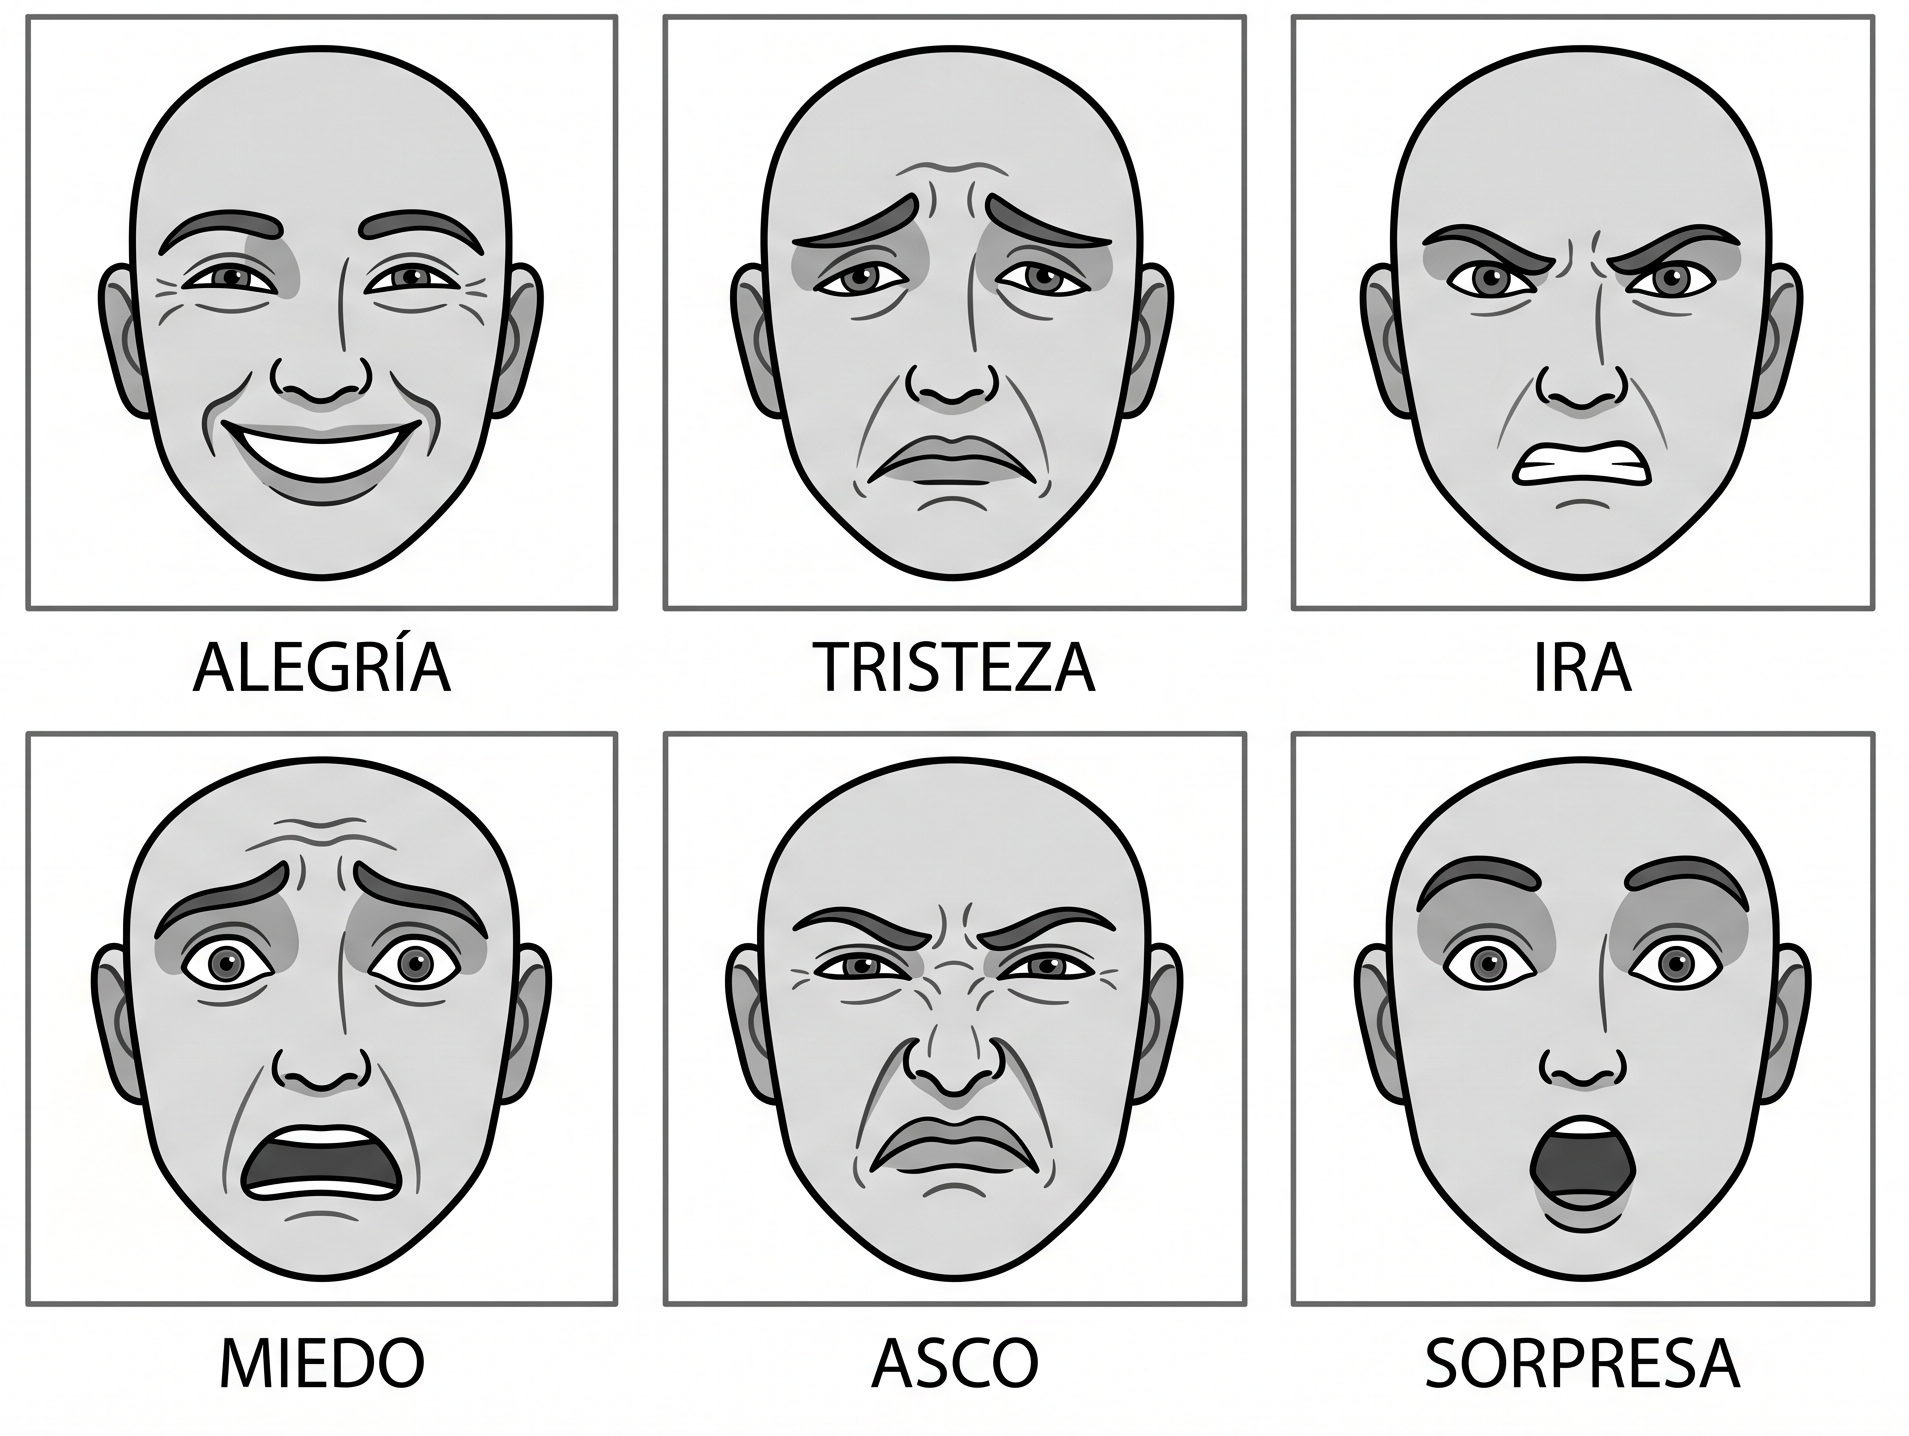
Figura 3. Expresiones faciales de emociones básicas según Ekman.
5.2. El debate universalidad/variabilidad: revisión post-WEIRD
Durante décadas, los estudios transculturales de Ekman (1972) que mostraban que personas de culturas aisladas (como los fore de Papua Nueva Guinea) reconocían expresiones faciales de emociones básicas fueron interpretados como evidencia de la universalidad de la expresividad emocional. Sin embargo, revisiones metodológicas recientes cuestionan estas conclusiones.
Lindquist et al. (2020) realizaron un metaanálisis de 286 estudios con participantes de 156 países y encontraron que la expresión de las emociones no es uniforme. Cuando se permite a los participantes seleccionar múltiples opciones (en lugar de elegir entre un conjunto cerrado de categorías emocionales), la consistencia transcultural disminuye sustantivamente.
El modelo circunflejo de Russell (1980), que organiza las emociones en un espacio bidimensional de valencia (positivo/negativo) y activación (alta/baja), ofrece un marco alternativo que evita los supuestos esencialistas sobre categorías discretas. En este modelo, las emociones específicas son instancias de un espacio continuo, y su denominación particular depende del lenguaje y los conceptos culturales disponibles.
5.3. La hipótesis de la retroalimentación facial: de Strack a la crisis de replicación
La hipótesis de la retroalimentación facial propone que los movimientos faciales no son simplemente expresiones de estados emocionales ya formados, sino que ejercen una influencia causal sobre la experiencia emocional subjetiva. Esta propuesta, que hunde sus raíces en la teoría de James-Lange (1884), fue formalizada experimentalmente por Strack, Martin y Stepper (1988) en un paradigma ingenioso. Los participantes que sostenían una lapicera entre los dientes (activando el músculo cigomático mayor, implicado en la sonrisa) reportaron mayor diversión ante caricaturas que quienes la sostenían entre los labios.
En 2016, una replicación registrada coordinada por Wagenmakers incluyó 1.894 participantes distribuidos en 17 laboratorios independientes y no reprodujo el efecto original. Este fracaso de replicación se convirtió en uno de los hitos más citados de la crisis de replicación en psicología (el hallazgo, a partir de aproximadamente 2011, de que una proporción significativa de resultados clásicos de la disciplina no se reproducen cuando estudios independientes intentan repetirlos bajo las mismas condiciones). El metaanálisis más comprehensivo del campo (Coles et al., 2019), que analizó 138 estudios, encontró que el efecto global de la retroalimentación facial sobre la experiencia emocional es estadísticamente significativo pero pequeño y heterogéneo. Una colaboración multilaboratorio posterior (Coles et al., 2022), que incluyó una manipulación con lapicera dirigida explícitamente a producir una sonrisa, encontró evidencia de un efecto pequeño pero replicable.
El consenso actual es que la retroalimentación facial puede influir sobre la experiencia emocional, pero sus efectos son pequeños, modulados por el contexto social e informacional, y sensibles a diferencias metodológicas. Este episodio es emblemático de las lecciones de la crisis de replicación para la psicología afectiva y nos enseña que los efectos pequeños requieren muestras grandes y prerregistros para ser evaluados con precisión.
6. Bases neurales de la emoción: más allá del sistema límbico
6.1. Crítica al concepto de sistema límbico
Durante décadas, la neurociencia y la psicología presentaron el sistema límbico (amígdala, hipocampo, giro cingulado, hipotálamo y corteza orbitofrontal) como el sustrato neural de las emociones. Esta concepción, popularizada por MacLean (1952) con su modelo del cerebro trino, se ha vuelto insostenible a la luz de los datos de neuroimagen funcional contemporáneos. Las revisiones metaanalíticas de Lindquist et al. (2012) y Wager et al. (2015) muestran que no existe un conjunto de regiones cerebrales exclusivamente dedicadas a las emociones. Las mismas regiones típicamente asociadas con la emoción (incluyendo la amígdala) se activan en procesos cognitivos no emocionales, y regiones no consideradas parte del sistema límbico participan activamente en los procesos afectivos.
En particular, Lindquist et al. (2012) analizaron 91 estudios de neuroimagen con técnicas PET y fMRI y encontraron que ninguna región cerebral mostró activación consistente y específica para una sola categoría emocional. La amígdala, por ejemplo, se activó en estudios de miedo, pero también en alegría, ira y asco, y participó igualmente en procesos no emocionales, como la detección de novedad y la evaluación de la relevancia social de los rostros. La ínsula anterior, clásicamente asociada con el asco, mostró activación en todas las categorías emocionales estudiadas y también en tareas cognitivas no afectivas, como la toma de decisiones bajo incertidumbre. La corteza cingulada anterior participó tanto en la experiencia de dolor emocional como en la detección de conflictos cognitivos y el monitoreo de errores. Estos hallazgos son más consistentes con un modelo de redes distribuidas y parcialmente superpuestas que con la existencia de módulos emocionales discretos. Wager et al. (2015) mostraron que los patrones de activación cerebral asociados a cada categoría emocional son probabilísticos y parcialmente solapados, no deterministas ni anatómicamente segregados. Esta evidencia apoya la noción de degeneración neuronal propuesta por Barrett (2017), que plantea que la misma categoría emocional puede ser implementada por configuraciones neurales diferentes en distintos episodios, y la misma configuración neural puede participar en categorías emocionales diferentes según el contexto.
6.2. La amígdala: funciones y reconceptualizaciones
La amígdala sigue siendo la estructura más investigada en neurociencia afectiva, aunque su función ha sido reconceptualizada. El consenso actual (Adolphs, 2010; LeDoux, 2015) indica que la amígdala no es específicamente un centro del miedo sino una estructura multimodal que evalúa la relevancia biológica y social de los estímulos, especialmente aquellos que representan amenazas o recompensas potenciales. Lo que los estudios de neuroimagen en humanos confirman es que la amígdala modula la atención hacia estímulos emocionalmente relevantes, facilita la consolidación de memorias emocionales vía interacción con el hipocampo y envía proyecciones a la corteza prefrontal que influyen sobre el procesamiento evaluativo.
Anatómicamente, la amígdala no es una estructura unitaria sino un complejo nuclear compuesto por al menos trece núcleos agrupados en tres divisiones principales. La especificidad funcional de estos subnúcleos tiene implicancias directas, ya que las lesiones puntuales producen déficits diferentes (en las respuestas autonómicas condicionadas, en el aprendizaje del valor afectivo de los estímulos, en la adquisición de asociaciones estímulo-valor) (Davis & Whalen, 2001; Phelps & LeDoux, 2005). Estudios de neuroimagen funcional en humanos han mostrado que la amígdala responde no solo a expresiones faciales de miedo sino también a rostros de personas de grupos sociales percibidos como amenazantes, a estímulos ambiguos que requieren resolución evaluativa y a recompensas inesperadas. Esta amplitud funcional ha llevado a proponer que la función central de la amígdala es la evaluación de relevancia más que el procesamiento de una emoción específica (Sander et al., 2003).
6.3. La corteza prefrontal y la regulación neural
Las cortezas prefrontal ventromedial (CPFvm) y dorsolateral (CPFdl) son los sustratos de la regulación emocional y la toma de decisiones emocionalmente informada. Richard Davidson (2004) propuso un modelo de asimetría prefrontal en el cual la activación relativa del hemisferio izquierdo se asocia con tendencias de aproximación y afecto positivo, mientras que la activación del derecho se asocia con evitación y afecto negativo.
Las conexiones recíprocas entre la corteza prefrontal y la amígdala son el sustrato de la regulación emocional: la activación de la CPFvm durante la reevaluación cognitiva se acompaña de reducción de la activación amigdaloide (Ochsner & Gross, 2005). Esta evidencia apoya la idea de que las estrategias regulatorias que operan sobre el significado atribuido a los estímulos, como el reappraisal, tienen correlatos neurales de inhibición top-down.
6.4. La ínsula: integración interoceptiva
La ínsula anterior ha emergido como una de las regiones más importantes para la integración de señales interoceptivas y su conversión en estados afectivos (Craig, 2009). Esta región recibe proyecciones de las vías interoceptivas espinotalámicas y envía proyecciones a la corteza cingulada anterior y al córtex prefrontal ventromedial, y así configura un circuito para la representación del estado interno del cuerpo.
Las investigaciones de Seth y colaboradores (2012) proponen que la ínsula genera predicciones sobre el estado del cuerpo y compara estas predicciones con las señales ascendentes. Este modelo es estructuralmente compatible con la teoría de la emoción construida de Barrett (2017), porque ambas propuestas coinciden en que las emociones emergen de la combinación entre señales interoceptivas y conceptos aprendidos culturalmente, siendo la ínsula la interfaz neural entre el estado interno del cuerpo y la categorización emocional. Este modelo tiene aplicaciones clínicas potentes: la alexitimia puede conceptualizarse como un déficit de precisión en las predicciones interoceptivas, y las intervenciones que mejoran la conciencia interoceptiva (como la meditación o el mindfulness) serían eficaces porque aumentan la precisión de las predicciones interoceptivas y reducen la incertidumbre afectiva.
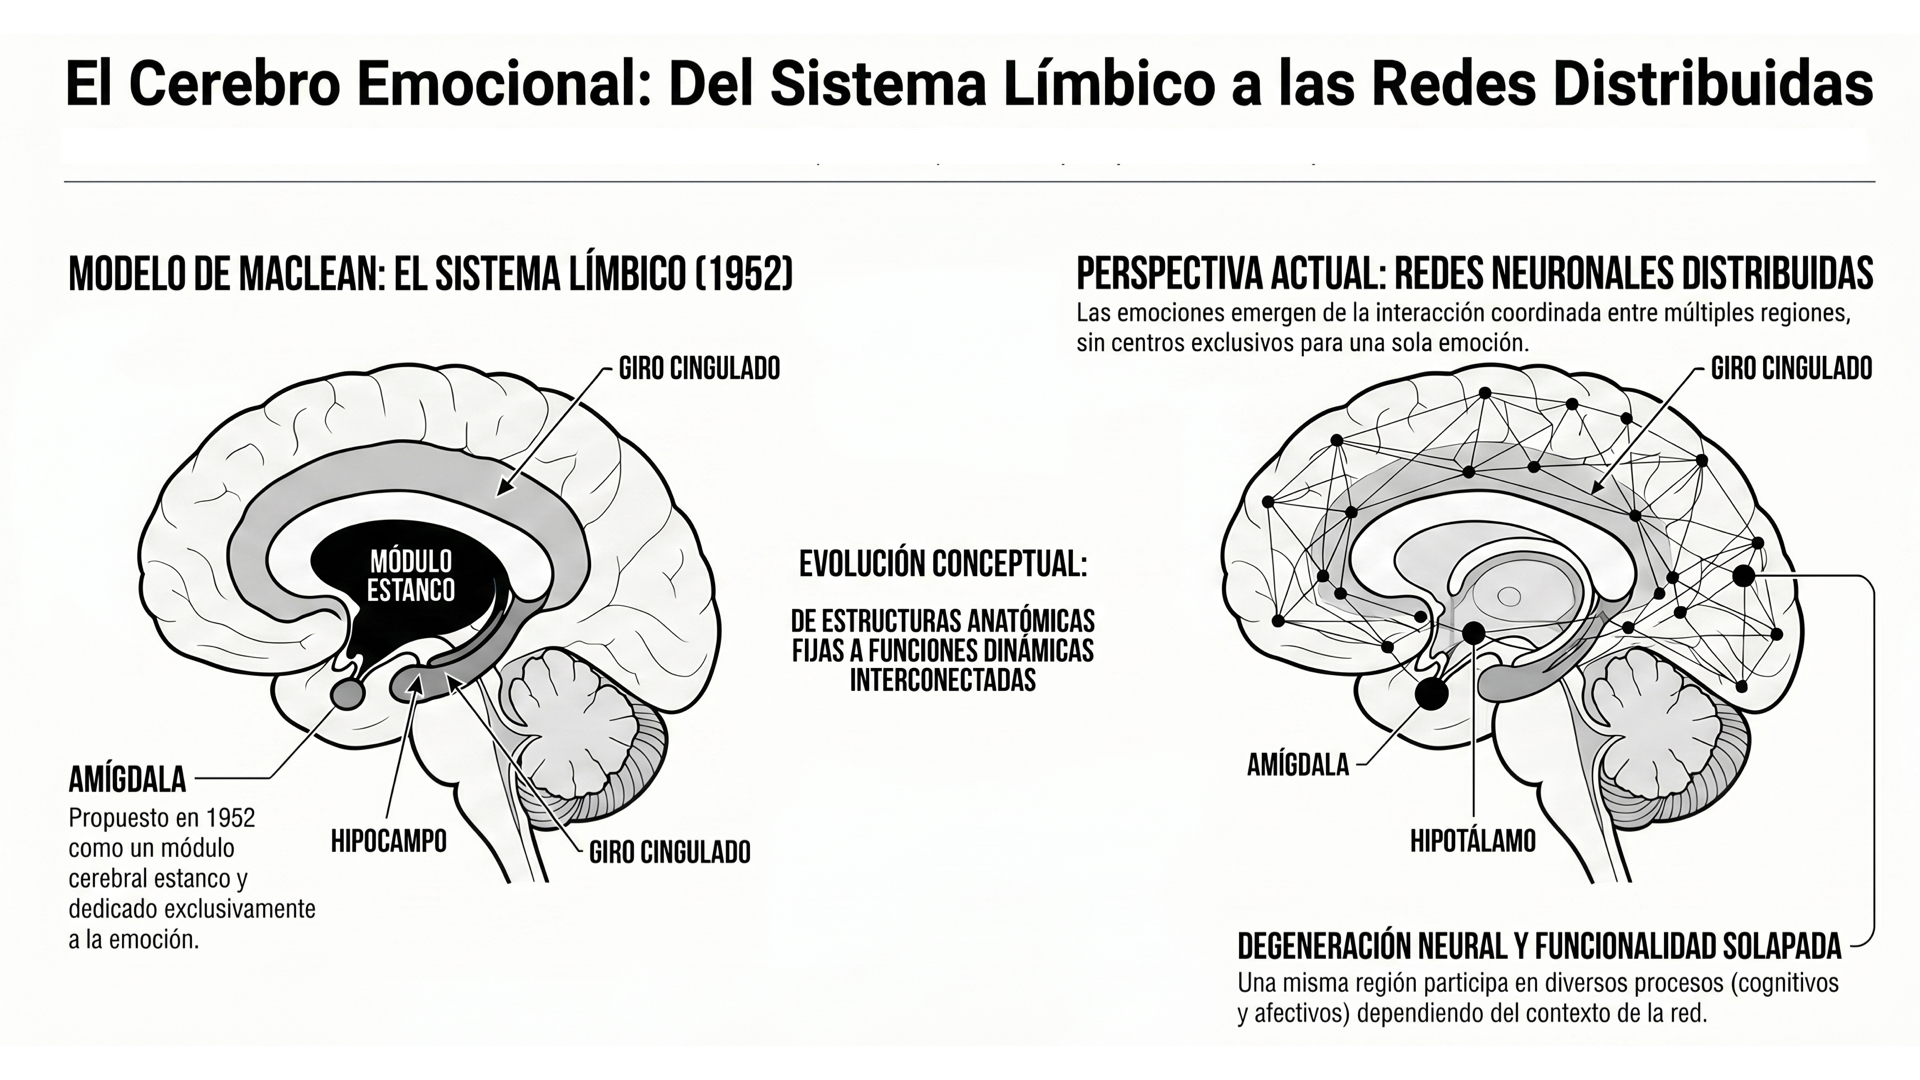
Figura 4. El cerebro y la emoción.
7. Emoción y memoria: codificación, consolidación y recuperación
7.1. La modulación emocional de la memoria declarativa
La emoción potencia la memoria, pero lo hace de manera selectiva y no uniformemente positiva. Los episodios emocionales son recordados con mayor viveza, mayor confianza subjetiva y mayor persistencia temporal que los episodios neutrales. Sin embargo, este realce se aplica preferentemente al núcleo emocional del evento, muchas veces a expensas de los detalles periféricos (el llamado efecto de túnel en la memoria, Safer et al., 1998).
Easterbrook (1959) formuló la hipótesis de la restricción atencional que subyace a este efecto. La activación emocional restringe el rango de indicios del ambiente a los que el organismo atiende, focalizando los recursos de procesamiento en los estímulos centrales y relevantes para la supervivencia a expensas de la información periférica. Este principio ha sido confirmado experimentalmente mediante paradigmas de ceguera atencional, en los cuales los participantes en estados de alta activación emocional fallan en detectar estímulos periféricos que los participantes en estados neutros detectan sin dificultad (Mather & Sutherland, 2011). La memoria dependiente de estado representa un fenómeno complementario. La información codificada en un estado emocional determinado se recupera con mayor facilidad cuando el individuo se encuentra en un estado emocional congruente en el momento de la recuperación. Este efecto ha sido documentado tanto para estados emocionales positivos como negativos y tiene implicancias clínicas directas. Los pacientes deprimidos muestran un sesgo de recuperación hacia memorias autobiográficas negativas congruentes con su estado afectivo actual, lo que contribuye al mantenimiento del episodio depresivo (Bower, 1981; Matt et al., 1992).
7.2. El modelo de LeDoux: procesamiento paralelo amigdaloide e hipocámpico
LeDoux (1999) propuso que el condicionamiento emocional involucra dos trayectos paralelos: la amígdala procesa la valencia y la significancia afectiva del estímulo y forma asociaciones emocionales implícitas, mientras que el hipocampo codifica el contexto episódico y la narrativa explícita del evento. La memoria emocional implícita (activación fisiológica, reacciones conductuales defensivas) puede ocurrir sin que la memoria explícita esté disponible y viceversa.
Esta disociación tiene relevancia clínica directa para la comprensión del trauma psicológico. En el trastorno de estrés postraumático, las respuestas emocionales condicionadas (activadas por la amígdala) pueden persistir incluso cuando la memoria explícita del evento traumático es fragmentaria o incompleta. Un desarrollo que ha transformado la comprensión del tratamiento del trauma es el descubrimiento de la reconsolidación de la memoria. Nader y colaboradores (2000) demostraron que las memorias emocionales consolidadas, cuando son reactivadas mediante la presentación del estímulo condicionado, entran en un estado lábil transitorio durante el cual pueden ser modificadas, actualizadas o incluso debilitadas. Este proceso de reconsolidación requiere nueva síntesis de proteínas en la amígdala basolateral. Si se bloquea farmacológicamente durante la ventana de reconsolidación (de aproximadamente seis horas), la memoria emocional pierde su potencia afectiva. Schiller y colaboradores (2010) extendieron este hallazgo a humanos, y mostraron que un procedimiento de extinción realizado dentro de la ventana de reconsolidación produce una reducción persistente de la respuesta condicionada que no muestra los fenómenos de retorno del miedo (reinstalación, recuperación espontánea) que limitan la eficacia de la extinción convencional. Estos hallazgos tienen implicancias terapéuticas directas, porque sugieren que las intervenciones clínicas realizadas durante la ventana de reconsolidación pueden modificar la memoria traumática de manera más profunda que la extinción convencional.
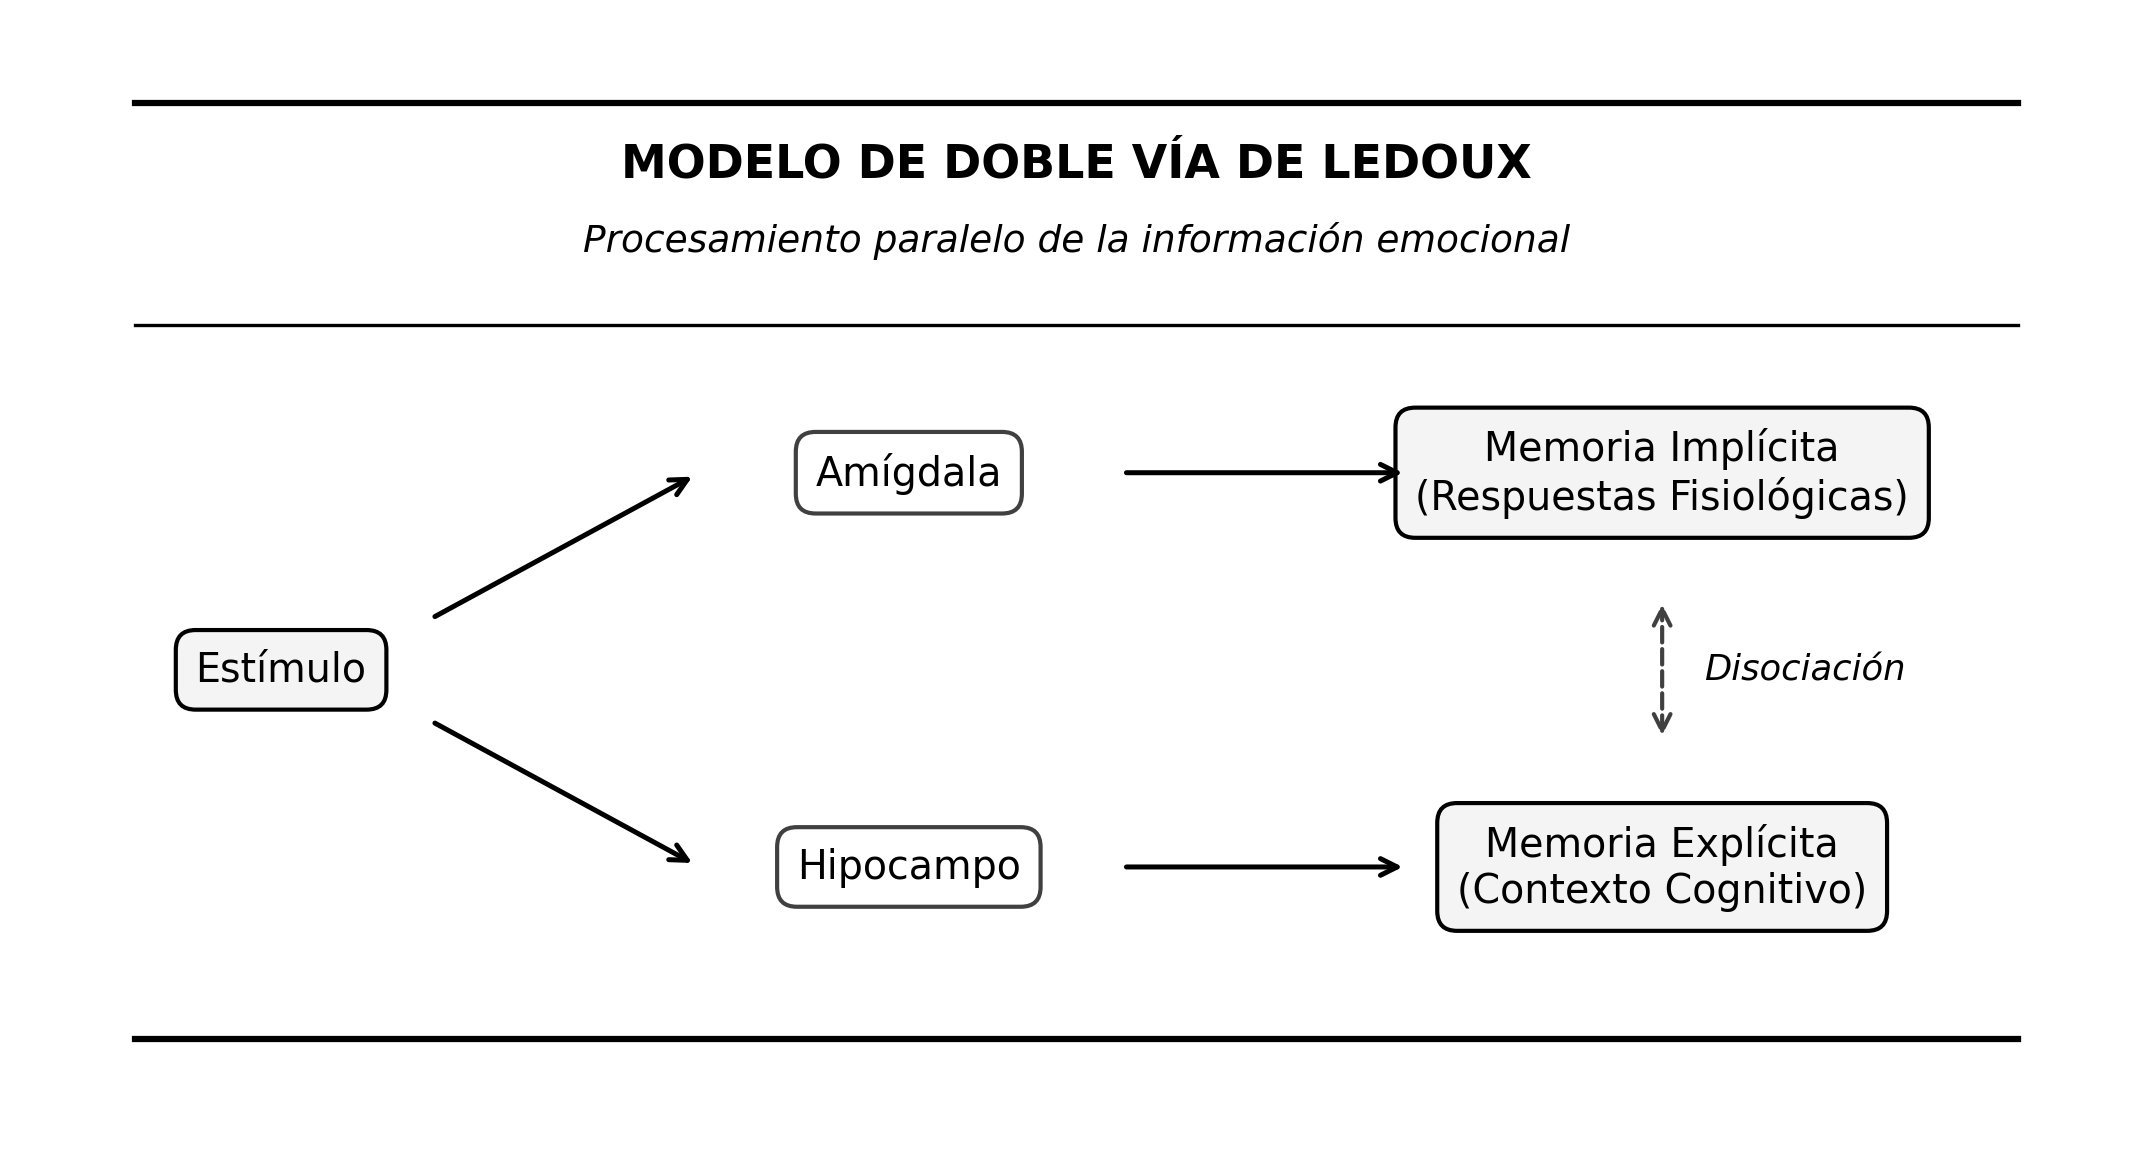
Figura 5. Modelo de doble vía de LeDoux.
7.3. Memorias de impacto y su sobreestimación subjetiva
Las memorias de alto impacto emocional (Brown & Kulik, 1977) son recordadas con una claridad y confianza subjetiva extraordinarias. Sin embargo, investigaciones longitudinales muestran que estas memorias están sujetas a distorsiones y recodificaciones similares a las memorias ordinarias (Neisser & Harsch, 1992). La ilusión de exactitud que las acompaña no se debe a su fidelidad real sino a la potenciación de la consolidación por la adrenalina y el cortisol liberados durante eventos de alta carga emocional.
La adrenalina liberada en situaciones de alta carga emocional activa receptores betaadrenérgicos en la amígdala basolateral, lo que potencia la plasticidad sináptica en las redes hipocámpicas responsables de la consolidación (McGaugh, 2004). El resultado es una memoria más robusta para el contenido central emocional del evento, lo que en términos evolutivos resulta adaptativo porque nos lleva a aprender eficientemente de los eventos de mayor relevancia para la supervivencia.
8. Emoción y toma de decisiones: la hipótesis del marcador somático
El modelo racionalista clásico de la toma de decisiones suponía que las emociones constituyen interferencias irracionales que degradan la calidad del juicio. Los trabajos de Antonio Damasio y colaboradores revirtieron esta suposición de manera decisiva, mostrando que las emociones son componentes necesarios de la toma de decisiones adaptativa.
8.1. Los casos de Phineas Gage y Elliot
Phineas Gage (1848) es el caso neurológico más citado de la historia. Una barra de hierro atravesó su lóbulo frontal y transformó su personalidad: lo convirtió de una persona responsable y confiable en alguien errático, impulsivo e incapaz de planificar a largo plazo, sin afectar sustantivamente sus capacidades intelectuales generales.
El caso Elliot, estudiado por Damasio en 1994, actualizó el caso Gage. Elliot presentaba daño bilateral en la corteza prefrontal ventromedial por un meningioma extirpado quirúrgicamente. Su coeficiente intelectual era normal, sus funciones ejecutivas estaban preservadas, y sin embargo tomaba decisiones cotidianas y profesionales ruinosas de manera sistemática. La característica más llamativa era su aplanamiento afectivo. Elliot no experimentaba emociones anticipatorias frente a opciones con consecuencias claramente negativas.
8.2. La hipótesis del marcador somático
A partir de estos casos, Damasio (1994) formuló la hipótesis del marcador somático. En la historia de interacciones de un organismo con el ambiente, ciertos resultados quedan marcados somáticamente porque son asociados con señales corporales de valencia positiva o negativa. Así, a lo largo de nuestra vida vamos marcando situaciones como emocionalmente positivas o negativas. Cuando evaluamos opciones en una situación decisional, estas marcas somáticas actúan como señales de alarma o incentivo que preseleccionan opciones antes de que el razonamiento deliberado tenga lugar.
La evidencia experimental más influyente proviene de la Iowa Gambling Task (IGT; Bechara et al., 1994). Esta es una prueba que mide la participación de las emociones en la toma de decisiones. Se sienta al participante frente a 4 mazos de cartas. En los mazos hay cartas ganadoras y cartas perdedoras. Algunos de los mazos tienen consecuencias más intensas (hacen ganar o perder más) y otros menos intensas (hacen ganar y perder menos). Participantes controles sanos muestran respuestas de conductancia de la piel anticipatorias ante los mazos desventajosos antes de tener conocimiento explícito de cuáles son desfavorables, mientras que pacientes con lesión en la corteza prefrontal ventromedial no muestran estas señales anticipatorias y eligen sistemáticamente de manera desventajosa.
Damasio distingue dos mecanismos por los cuales los marcadores somáticos ejercen su influencia. El primero es el bucle corporal. Las señales aferentes del cuerpo (cambios cardiovasculares, gastrointestinales, musculoesqueléticos) viajan a través del nervio vago y las vías espinotalámicas hasta la corteza somatosensorial y la ínsula, donde son integradas y representadas como estados somáticos. El segundo es el bucle como si. El cerebro puede generar representaciones anticipatorias del estado corporal esperado sin necesidad de que el cuerpo cambie efectivamente, mediante la activación de las cortezas somatosensoriales y la ínsula anterior a partir de representaciones almacenadas en la CPFvm (Bechara & Damasio, 2005). El bucle como si es computacionalmente más eficiente porque no requiere la latencia de la retroalimentación corporal real, y permite la evaluación rápida y paralela de múltiples opciones decisionales. Bechara et al. (1997) mostraron que en el IGT los participantes sanos comienzan a generar respuestas de conductancia de la piel anticipatorias ante los mazos desventajosos aproximadamente diez ensayos antes de poder verbalizar cuáles mazos son desfavorables, un hallazgo que sugiere que las señales somáticas guían la conducta decisional antes de que el conocimiento explícito esté disponible.
La hipótesis del marcador somático ha recibido también críticas sustantivas. Dunn y colaboradores (2006), en una revisión comprehensiva, señalaron que la relación entre las señales corporales anticipatorias y la toma de decisiones ventajosa no es tan consistente como los estudios originales sugerían, y que factores como la sensibilidad a la recompensa inmediata y el aprendizaje por refuerzo pueden explicar parte de los hallazgos sin necesidad de recurrir a señales somáticas. No obstante, la contribución central de Damasio permanece vigente, la demostración de que la emoción no es un obstáculo para la razón sino una condición de posibilidad de la toma de decisiones adaptativa en situaciones de complejidad e incertidumbre.
9. Desarrollo emocional a lo largo del ciclo vital
9.1. Primera infancia: la ontogenia de la emoción
Las emociones tienen una ontogenia que la ciencia afectiva contemporánea ha documentado con considerable detalle. Los neonatos manifiestan respuestas afectivas funcionales desde el nacimiento (llanto, sonrisa refleja, expresiones de disgusto ante sabores amargos), aunque la distinción entre expresiones emocionales innatas y aprendidas sigue siendo debatida.
La sonrisa social genuina (que involucra el músculo orbicular del ojo, AU 6) aparece entre las 6 y 8 semanas de vida. La ansiedad ante lo extraño emerge entre los 6 y 8 meses, y coincide con la consolidación del apego selectivo. Las emociones autoconscientes (vergüenza, orgullo, culpa, embarazo) no aparecen hasta los 18 meses a 3 años, en paralelo con el desarrollo del sentido del yo (Lewis, 2000).
La teoría del apego (Ainsworth et al., 1978; Bowlby, 1969) proporciona el marco más influyente para comprender el desarrollo de la regulación emocional en la infancia. El apego seguro (asociado con figuras de cuidado sensibles y responsivas) proporciona una base segura desde la cual el niño puede explorar y regular sus emociones. Los estilos de apego inseguro (ansioso, evitativo, desorganizado) se asocian con patrones diferenciales de regulación emocional que persisten a lo largo del desarrollo.
9.2. Adolescencia: la asimetría madurativa
La adolescencia es un período caracterizado por una asimetría en los ritmos madurativos de los sistemas cerebrales involucrados en la emoción y el control. El sistema límbico y los circuitos de recompensa maduran antes que la corteza prefrontal, lo que genera un período de mayor reactividad emocional y búsqueda de sensaciones con capacidades de control inhibitorio aún en desarrollo (Casey et al., 2008; Steinberg, 2008).
Esta asimetría explicaría la mayor prevalencia de comportamientos de riesgo, la sensibilidad especial a la recompensa social y el rechazo de pares, y la intensidad de las experiencias afectivas que caracterizan la adolescencia.
El modelo de sistemas duales (Casey et al., 2008; Steinberg, 2008) formaliza esta asimetría madurativa. El sistema socioemocional, anclado en la amígdala, el estriado ventral y el núcleo accumbens, alcanza un pico de reactividad durante la pubertad temprana, impulsado por los cambios hormonales que acompañan la maduración gonadal. El sistema de control cognitivo, dependiente de la corteza prefrontal dorsolateral y la corteza cingulada anterior, continúa su mielinización y poda sináptica hasta la tercera década de vida. El resultado es un período del desarrollo en el que la capacidad de experimentar emociones intensas (particularmente en el dominio de la recompensa social) excede temporalmente la capacidad de regular esas emociones de manera deliberada. Somerville et al. (2010) demostraron que la reactividad del estriado ventral ante estímulos sociales recompensantes (como la aprobación de pares) alcanza su pico durante la adolescencia media y excede los niveles tanto de los niños como de los adultos, mientras que la capacidad de inhibición de respuestas impulsivas muestra una trayectoria madurativa lineal y gradual. Esta disyunción temporal explica por qué la toma de decisiones de riesgo en adolescentes se incrementa específicamente en contextos sociales (en presencia de pares) y no en situaciones de evaluación individual, un hallazgo replicado tanto en paradigmas conductuales como en estudios de neuroimagen funcional (Chein et al., 2011).
9.3. Envejecimiento: la paradoja del bienestar
El envejecimiento plantea lo que Carstensen (2006) denominó la paradoja del bienestar en el envejecimiento. A pesar de las pérdidas acumuladas (salud, vínculos, roles sociales), las personas mayores reportan sistemáticamente mayor bienestar emocional que los adultos jóvenes. La teoría de la selectividad socioemocional (Carstensen, 2006) propone que, con el avance de la edad, la percepción de un horizonte temporal limitado orienta la atención y las metas hacia el presente y hacia la calidad de los vínculos afectivos.
El llamado efecto de positividad (preferencia atencional hacia los estímulos positivos sobre los negativos, más marcada en adultos mayores que en jóvenes) tiene bases neurales en la reducción de la reactividad amigdaloide ante estímulos negativos con el envejecimiento normal (Mather & Carstensen, 2005).
Scheibe y Carstensen (2010) propusieron que el efecto de positividad no es un déficit atencional sino una manifestación de un cambio motivacional adaptativo. Los adultos mayores invierten activamente sus recursos cognitivos en la regulación emocional proactiva, evitando la atención a estímulos que podrían perturbar su equilibrio afectivo. Esta estrategia regulatoria deliberada es posible precisamente porque las capacidades de regulación emocional del lóbulo prefrontal se mantienen relativamente preservadas en el envejecimiento normal, a diferencia de las funciones ejecutivas más dependientes de la velocidad de procesamiento. La convergencia entre regulación emocional mejorada y declive cognitivo en dominios no afectivos representa una de las paradojas más productivas de la gerontopsicología contemporánea. Sugiere que el cerebro envejecido redistribuye sus recursos hacia los dominios de mayor relevancia motivacional para el individuo, priorizando el bienestar emocional sobre la eficiencia de procesamiento general.
10. Síntesis integradora: convergencias, tensiones y perspectivas futuras
A lo largo de este capítulo hemos recorrido el campo de la emoción desde sus definiciones y componentes hasta las neurociencias, los debates culturales y las aplicaciones clínicas y educativas.
Existe acuerdo creciente en que la emoción no puede reducirse a ninguno de sus componentes de manera aislada. No es solo fisiología, no es solo cognición, no es solo expresión. La perspectiva componencial, enriquecida por los modelos de procesamiento predictivo, ofrece el marco más integrador disponible. Hay también consenso en que la distinción clásica emoción-cognición es falsa o al menos profundamente equívoca. Los procesos afectivos y los cognitivos comparten sustratos neurales, se influyen mutuamente de manera permanente, y la dicotomía solo es útil como herramienta analítica provisional.
La función adaptativa de la emoción (tanto de las negativas como de las positivas) está sólidamente establecida. Las emociones son señales que coordinan la acción, guían las decisiones, regulan los vínculos sociales y mantienen la integridad fisiológica del organismo.
Las tensiones no resueltas organizan la agenda de investigación. El debate universalidad/construccionismo continúa sin resolución definitiva y probablemente admita soluciones de compromiso más matizadas que las posiciones extremas. Puede haber universales afectivos en el nivel de dimensiones básicas de valencia y activación (Russell, 1980), en los circuitos subcorticales de supervivencia (LeDoux, 2019) y en algunos aspectos del desarrollo emocional temprano, al tiempo que la organización de estos ingredientes en categorías emocionales discretas con nombres, expresiones y funciones culturalmente específicas es ampliamente variable. El sesgo WEIRD es un problema metodológico estructural que la ciencia afectiva apenas comienza a abordar de manera sistemática. La propuesta de Mesquita (2022) de reorientar el campo desde el modelo MINE (caracterizado como un modelo Inside-Out, que supone que la emoción es un estado interno del individuo que se activa ante estímulos y que determina el comportamiento expresivo y social) hacia el modelo OURS (modelo Outside-In, que propone que las emociones son prácticas relacionales, que emergen en el contexto de interacciones sociales concretas y son moldeadas por las expectativas mutuas, los roles y las normas de expresión) no implica abandonar la investigación empírica rigurosa, sino expandir su base muestral, sus metodologías y sus preguntas.
Cuatro líneas de desarrollo emergente merecen atención especial. En primer lugar, la integración del marco de procesamiento predictivo con la ciencia afectiva promete una reformulación profunda de los modelos de appraisal y de regulación, que sitúa la emoción en el contexto de la gestión alostática del organismo. En segundo lugar, la neurociencia computacional de la emoción (que modela los procesos afectivos mediante simulaciones formales) ofrece herramientas para resolver debates que la investigación experimental clásica no puede dirimir por sí sola. En tercer lugar, la intersección entre ciencia afectiva y tecnología plantea preguntas urgentes. Los sistemas de reconocimiento emocional automatizado utilizados en seguridad aeroportuaria, evaluación de candidatos laborales y monitoreo de estudiantes están construidos sobre supuestos de universalidad y naturalidad de las expresiones emocionales que la evidencia científica cuestiona. Las implicancias éticas son considerables. Finalmente, la aplicación del marco de regulación emocional al diseño de intervenciones de salud mental es un campo de enorme potencial, especialmente cuando se incorpora la variabilidad cultural como variable de diseño.
En conclusión, el campo de la ciencia afectiva es un área en constante desarrollo que hasta el día de hoy sigue planteando preguntas que aún no tienen respuesta definitiva.
Referencias
Adolphs, R. (2010). What does the amygdala contribute to social cognition? Annals of the New York Academy of Sciences, 1191(1), 42-61. https://doi.org/10.1111/j.1749-6632.2010.05445.x.
Ainsworth, M. D. S., Blehar, M. C., Waters, E., & Wall, S. (1978). Patterns of attachment: A psychological study of the strange situation. Lawrence Erlbaum Associates.
Arnold, M. B. (1960). Emotion and personality (2 vols.). Columbia University Press.
Bard, P. (1934). On emotional expression after decortication with some remarks on certain theoretical views. Psychological Review, 41(4), 309-329. https://doi.org/10.1037/h0070765.
Barrett, L. F. (2017). How emotions are made: The secret life of the brain. Houghton Mifflin Harcourt.
Barrett, L. F. (2022). Context reconsidered: Complex signal ensembles, relational meaning, and population thinking in psychological science. American Psychologist, 77(8), 894-920. https://doi.org/10.1037/amp0001054.
Bechara, A., Damasio, A. R., Damasio, H., & Anderson, S. W. (1994). Insensitivity to future consequences following damage to human prefrontal cortex. Cognition, 50(1-3), 7-15. https://doi.org/10.1016/0010-0277(94)90018-3.
Bechara, A., Damasio, H., Tranel, D., & Damasio, A. R. (1997). Deciding advantageously before knowing the advantageous strategy. Science, 275(5304), 1293-1295. https://doi.org/10.1126/science.275.5304.1293.
Bechara, A., & Damasio, A. R. (2005). The somatic marker hypothesis: A neural theory of economic decision. Games and Economic Behavior, 52(2), 336-372. https://doi.org/10.1016/j.geb.2004.06.010.
Bower, G. H. (1981). Mood and memory. American Psychologist, 36(2), 129-148. https://doi.org/10.1037/0003-066X.36.2.129.
Bowlby, J. (1969). Attachment and loss: Vol. 1. Attachment. Basic Books.
Bradley, M. M., & Lang, P. J. (1994). Measuring emotion: The Self-Assessment Manikin and the Semantic Differential. Journal of Behavior Therapy and Experimental Psychiatry, 25(1), 49-59. https://doi.org/10.1016/0005-7916(94)90063-9.
Brown, R., & Kulik, J. (1977). Flashbulb memories. Cognition, 5(1), 73-99. https://doi.org/10.1016/0010-0277(77)90018-X.
Camras, L. A., & Fatani, S. S. (2008). The development of facial expressions: Current perspectives on infant emotions. En M. Lewis, J. M. Haviland-Jones & L. F. Barrett (Eds.), Handbook of emotions (3.ª ed., pp. 291-303). Guilford Press.
Cannon, W. B. (1927). The James-Lange theory of emotions: A critical examination and an alternative theory. American Journal of Psychology, 39(1/4), 106-124. https://doi.org/10.2307/1415404.
Cannon, W. B. (1929). Bodily changes in pain, hunger, fear and rage: An account of recent researches into the function of emotional excitement (2.ª ed.). Appleton.
Carstensen, L. L. (2006). The influence of a sense of time on human development. Science, 312(5782), 1913-1915. https://doi.org/10.1126/science.1127488.
Casey, B. J., Jones, R. M., & Hare, T. A. (2008). The adolescent brain. Annals of the New York Academy of Sciences, 1124(1), 111-126. https://doi.org/10.1196/annals.1440.010.
Chein, J., Albert, D., O’Brien, L., Uckert, K., & Steinberg, L. (2011). Peers increase adolescent risk taking by enhancing activity in the brain’s reward circuitry. Developmental Science, 14(2), F1-F10. https://doi.org/10.1111/j.1467-7687.2010.01035.x.
Coles, N. A., Larsen, J. T., & Lench, H. C. (2019). A meta-analysis of the facial feedback literature: Effects of facial feedback on emotional experience are small and variable. Psychological Bulletin, 145(6), 610-651. https://doi.org/10.1037/bul0000194.
Coles, N. A., March, D. S., Marmolejo-Ramos, F., Larsen, J. T., Arinze, N. C., Ndukaihe, I., & Liuzza, M. T. (2022). A multi-lab test of the facial feedback hypothesis by the Many Smiles Collaboration. Nature Human Behaviour, 6(12), 1731-1742. https://doi.org/10.1038/s41562-022-01458-9.
Craig, A. D. (2009). How do you feel — now? The anterior insula and human awareness. Nature Reviews Neuroscience, 10(1), 59-70. https://doi.org/10.1038/nrn2555.
Damasio, A. (1994). Descartes’ error: Emotion, reason, and the human brain. Putnam.
Darwin, C. (1872). The expression of the emotions in man and animals. John Murray.
Davidson, R. J. (2004). What does the prefrontal cortex ‘do’ in affect: Perspectives on frontal EEG asymmetry research. Biological Psychology, 67(1-2), 219-233. https://doi.org/10.1016/j.biopsycho.2004.03.008.
Davis, M., & Whalen, P. J. (2001). The amygdala: Vigilance and emotion. Molecular Psychiatry, 6(1), 13-34. https://doi.org/10.1038/sj.mp.4000812.
Dunn, B. D., Dalgleish, T., & Lawrence, A. D. (2006). The somatic marker hypothesis: A critical evaluation. Neuroscience & Biobehavioral Reviews, 30(2), 239-271. https://doi.org/10.1016/j.neubiorev.2005.07.001.
Easterbrook, J. A. (1959). The effect of emotion on cue utilization and the organization of behavior. Psychological Review, 66(3), 183-201. https://doi.org/10.1037/h0047707.
Ekman, P. (1972). Universals and cultural differences in facial expressions of emotion. En J. Cole (Ed.), Nebraska Symposium on Motivation (Vol. 19, pp. 207-283). University of Nebraska Press.
Ekman, P., & Friesen, W. V. (1978). Facial Action Coding System: A technique for the measurement of facial movement. Consulting Psychologists Press.
Ekman, P. (1992). An argument for basic emotions. Cognition & Emotion, 6(3-4), 169-200. https://doi.org/10.1080/02699939208411068.
Ekman, P., & Cordaro, D. (2011). What is meant by calling emotions basic? Emotion Review, 3(4), 364-370. https://doi.org/10.1177/1754073911410740.
Henrich, J., Heine, S. J., & Norenzayan, A. (2010). The weirdest people in the world. Behavioral and Brain Sciences, 33(2-3), 61-83. https://doi.org/10.1017/S0140525X0999152X.
Izard, C. E. (2011). Forms and functions of emotions: Matters of emotion-cognition interactions. Emotion Review, 3(4), 371-378. https://doi.org/10.1177/1754073911410737.
James, W. (1884). What is an emotion? Mind, 9(34), 188-205. https://doi.org/10.1093/mind/os-IX.34.188.
Lang, P. J., Bradley, M. M., & Cuthbert, B. N. (1999). International Affective Picture System (IAPS): Instruction manual and affective ratings (Technical Report A-8). University of Florida.
Lange, C. G. (1885). Om sindsbevegelser: Et psyko-fysiologisk studie [Sobre los estados de ánimo: un estudio psicofisiológico]. Jacob Lund. [Reimpreso en inglés: Dunlap, K. (Ed.) (1922). The emotions. Williams & Wilkins.
Lau, H., Michel, M., LeDoux, J. E. & Fleming, S. (2022). The mnemonic basis of subjective experience. Nature Reviews Psychology, 1 (8):479-488. https://doi.org/10.1038/s44159-022-00068-6.
Lazarus, R. S. (1991). Emotion and adaptation. Oxford University Press.
LeDoux, J. E. (1986). Sensory systems and emotion: A model of affective processing. Integrative Psychiatry, 4(4), 237-243.
LeDoux, J. E. (1994). Emotion, memory and the brain. Scientific American, 270(6), 50-57. https://doi.org/10.1038/scientificamerican0694-50.
LeDoux, J. E. (1996). The emotional brain: The mysterious underpinnings of emotional life. Simon & Schuster.
LeDoux, J. E. (2015). Anxious: Using the brain to understand and treat fear and anxiety. Viking.
LeDoux, J. E. (2019). The deep history of ourselves: The four-billion-year story of how we got conscious brains. Viking.
Lewis, M. (2000). Self-conscious emotions: Embarrassment, pride, shame, and guilt. En M. Lewis y J. M. Haviland-Jones (Eds.), Handbook of emotions (2.ª ed., pp. 623-636). Guilford Press.
Lindquist, K. A., Wager, T. D., Kober, H., Bliss-Moreau, E., & Barrett, L. F. (2012). The brain basis of emotion: A meta-analytic review. Behavioral and Brain Sciences, 35(3), 121-143. https://doi.org/10.1017/S0140525X11000446.
Lindquist, K. A., Gendron, M., & Satpute, A. B. (2020). Language and emotion: Putting words into feelings and feelings into words. En L. F. Barrett, M. Lewis y J. M. Haviland-Jones (Eds.), Handbook of emotions (4.ª ed., pp. 579-594). Guilford Press.
MacLean, P. D. (1952). Some psychiatric implications of physiological studies on the frontotemporal portion of the limbic system (visceral brain). Electroencephalography and Clinical Neurophysiology, 4(4), 407-418. https://doi.org/10.1016/0013-4694(52)90073-4.
Mather, M., & Carstensen, L. L. (2005). Aging and motivated cognition: The positivity effect in attention and memory. Trends in Cognitive Sciences, 9(10), 496-502. https://doi.org/10.1016/j.tics.2005.08.005.
Mather, M., & Sutherland, M. R. (2011). Arousal-biased competition in perception and memory. Perspectives on Psychological Science, 6(2), 114-133. https://doi.org/10.1177/1745691611400234.
Matsumoto, D., Frank, M. G., & Hwang, H. S. (Eds.) (2013). Nonverbal communication: Science and applications. SAGE Publications. https://doi.org/10.4135/9781452244037.
Matt, G. E., Vázquez, C., & Campbell, W. K. (1992). Mood-congruent recall of affectively toned stimuli: A meta-analytic review. Clinical Psychology Review, 12(2), 227-255. https://doi.org/10.1016/0272-7358(92)90116-P.
McEwen, B. S. (1998). Protective and damaging effects of stress mediators. New England Journal of Medicine, 338(3), 171-179. https://doi.org/10.1056/NEJM199801153380307.
McGaugh, J. L. (2004). The amygdala modulates the consolidation of memories of emotionally arousing experiences. Annual Review of Neuroscience, 27, 1-28. https://doi.org/10.1146/annurev.neuro.27.070203.144157.
Mesquita, B. (2022). Between us: How cultures create emotions. W. W. Norton & Company.
Nader, K., Schafe, G. E., & LeDoux, J. E. (2000). Fear memories require protein synthesis in the amygdala for reconsolidation after retrieval. Nature, 406(6797), 722-726. https://doi.org/10.1038/35021052.
Neisser, U., & Harsch, N. (1992). Phantom flashbulbs: False recollections of hearing the news about Challenger. En E. Winograd y U. Neisser (Eds.), Affect and accuracy in recall: Studies of “flashbulb” memories (pp. 9-31). Cambridge University Press.
Niedenthal, P. M. (2007). Embodying emotion. Science, 316(5827), 1002-1005. https://doi.org/10.1126/science.1136930.
Niedenthal, P. M., & Ric, F. (2017). Psychology of emotion (2.ª ed.). Psychology Press.
Ochsner, K. N., & Gross, J. J. (2005). The cognitive control of emotion. Trends in Cognitive Sciences, 9(5), 242-249. https://doi.org/10.1016/j.tics.2005.03.010.
Panksepp, J. (1998). Affective neuroscience: The foundations of human and animal emotions. Oxford University Press.
Panksepp, J., & Biven, L. (2012). The archaeology of mind: Neuroevolutionary origins of human emotions. W. W. Norton & Company.
Papez, J. W. (1937). A proposed mechanism of emotion. Archives of Neurology and Psychiatry, 38(4), 725-743. https://doi.org/10.1001/archneurpsyc.1937.02260220069003.
Phelps, E. A., & LeDoux, J. E. (2005). Contributions of the amygdala to emotion processing: From animal models to human behavior. Neuron, 48(2), 175-187. https://doi.org/10.1016/j.neuron.2005.09.025.
Plutchik, R. (1980). Emotion: A psychoevolutionary synthesis. Harper & Row.
Plutchik, R. (1991). The emotions (ed. rev.). University Press of America.
Porter, S., & ten Brinke, L. (2008). Reading between the lies: Identifying concealed and falsified emotions in universal facial expressions. Psychological Science, 19(5), 508-514. https://doi.org/10.1111/j.1467-9280.2008.02116.x.
Russell, J. A. (1980). A circumplex model of affect. Journal of Personality and Social Psychology, 39(6), 1161-1178. https://doi.org/10.1037/h0077714.
Safer, M. A., Christianson, S.-Å., Autry, M. W., & Österlund, K. (1998). Tunnel memory for traumatic events. Applied Cognitive Psychology, 12(2), 99-117. https://doi.org/10.1002/(SICI)1099-0720(199804)12:2<99::AID-ACP509>3.0.CO;2-7.
Sander, D., Grafman, J., & Zalla, T. (2003). The human amygdala: An evolved system for relevance detection. Reviews in the Neurosciences, 14(4), 303-316. https://doi.org/10.1515/REVNEURO.2003.14.4.303.
Sander, D., & Scherer, K. R. (Eds.) (2014). The Oxford Companion to Emotion and the Affective Sciences. Oxford University Press.
Schachter, S., & Singer, J. (1962). Cognitive, social, and physiological determinants of emotional state. Psychological Review, 69(5), 379-399. https://doi.org/10.1037/h0046234.
Scheibe, S., & Carstensen, L. L. (2010). Emotional aging: Recent findings and future trends. The Journals of Gerontology Series B, 65B(2), 135-144. https://doi.org/10.1093/geronb/gbp132.
Scherer, K. R. (2001). Appraisal considered as a process of multilevel sequential checking. En K. R. Scherer, A. Schorr & T. Johnstone (Eds.), Appraisal processes in emotion: Theory, methods, research (pp. 92-120). Oxford University Press.
Scherer, K. R., & Moors, A. (2019). The emotion process: Event appraisal and component differentiation. Annual Review of Psychology, 70, 719-745. https://doi.org/10.1146/annurev-psych-122216-011854.
Schiller, D., Monfils, M.-H., Raio, C. M., Johnson, D. C., LeDoux, J. E., & Phelps, E. A. (2010). Preventing the return of fear in humans using reconsolidation update mechanisms. Nature, 463(7277), 49–53. https://doi.org/10.1038/nature08637.
Seth, A. K., Suzuki, K., & Critchley, H. D. (2012). An interoceptive predictive coding model of conscious presence. Frontiers in Psychology, 2, 395. https://doi.org/10.3389/fpsyg.2011.00395.
Seth, A. K. (2021). Being you: A new science of consciousness. Faber & Faber.
Sifneos, P. E. (1973). The prevalence of ‘alexithymic’ characteristics in psychosomatic patients. Psychotherapy and Psychosomatics, 22(2-6), 255-262. https://doi.org/10.1159/000286529.
Smith, C. A., & Lazarus, R. S. (1993). Appraisal components, core relational themes, and the emotions. Cognition & Emotion, 7(3-4), 233-269. https://doi.org/10.1080/02699939308409189.
Somerville, L. H., Jones, R. M., & Casey, B. J. (2010). A time of change: Behavioral and neural correlates of adolescent sensitivity to appetitive and aversive environmental cues. Brain and Cognition, 72(1), 124-133. https://doi.org/10.1016/j.bandc.2009.07.003.
Starr, L. R., Hershenberg, R., Li, Y. I., & Shaw, Z. A. (2017). When feelings lack precision: Low positive and negative emotion differentiation and depressive symptoms in daily life. Clinical Psychological Science, 5(4), 613-631. https://doi.org/10.1177/2167702617694657.
Steinberg, L. (2008). A social neuroscience perspective on adolescent risk-taking. Developmental Review, 28(1), 78-106. https://doi.org/10.1016/j.dr.2007.08.002.
Sterling, P., & Eyer, J. (1988). Allostasis: A new paradigm to explain arousal pathology. En S. Fisher & J. Reason (Eds.), Handbook of life stress, cognition and health (pp. 629-649). John Wiley & Sons.
Strack, F., Martin, L. L., & Stepper, S. (1988). Inhibiting and facilitating conditions of the human smile: A nonobtrusive test of the facial feedback hypothesis. Journal of Personality and Social Psychology, 54(5), 768-777. https://doi.org/10.1037/0022-3514.54.5.768.
Wagenmakers, E.-J., Beek, T., Dijkhoff, L., Gronau, Q. F., Acosta, A., Adams, R. B., & Zwaan, R. A. (2016). Registered replication report: Strack, Martin, & Stepper (1988). Perspectives on Psychological Science, 11(6), 917-928. https://doi.org/10.1177/1745691616674458.
Wager, T. D., Kang, J., Johnson, T. D., Nichols, T. E., Satpute, A. B., & Barrett, L. F. (2015). A Bayesian model of category-specific emotional brain responses. PLOS Computational Biology, 11(4), e1004066. https://doi.org/10.1371/journal.pcbi.1004066.
